Marine biodiversity and naturetypes in the inner Porsangerfjord
Inner Porsangerfjord comprises the innermost part of Porsangerfjord in Finnmark County, northern Norway. The area is relatively shallow (mainly above 100 m), but features a varied seabed topography with both hard- and soft-bottom habitats, shallow sills, and deeper basins reaching depths of approximately 175 m. The fjord also has a distinctive hydrography, which contributes to its inclusion in Norway's national marine conservation plan as an “Arctic fjord”.
The Institute of Marine Research has compiled existing knowledge on marine biodiversity, management-relevant species, and nature types, and conducted new mapping during the summer of 2025. The survey focused on kelp forests, seaweed communities, eelgrass (Zostera marina), Icelandic scallop (Chlamys islandica), horse mussels (Modiolus modiolus) and sublittoral occurrences of blue mussels (Mytilus edulis), as well as habitats made of corals and sponges. In total, 65 transects were surveyed using underwater video.
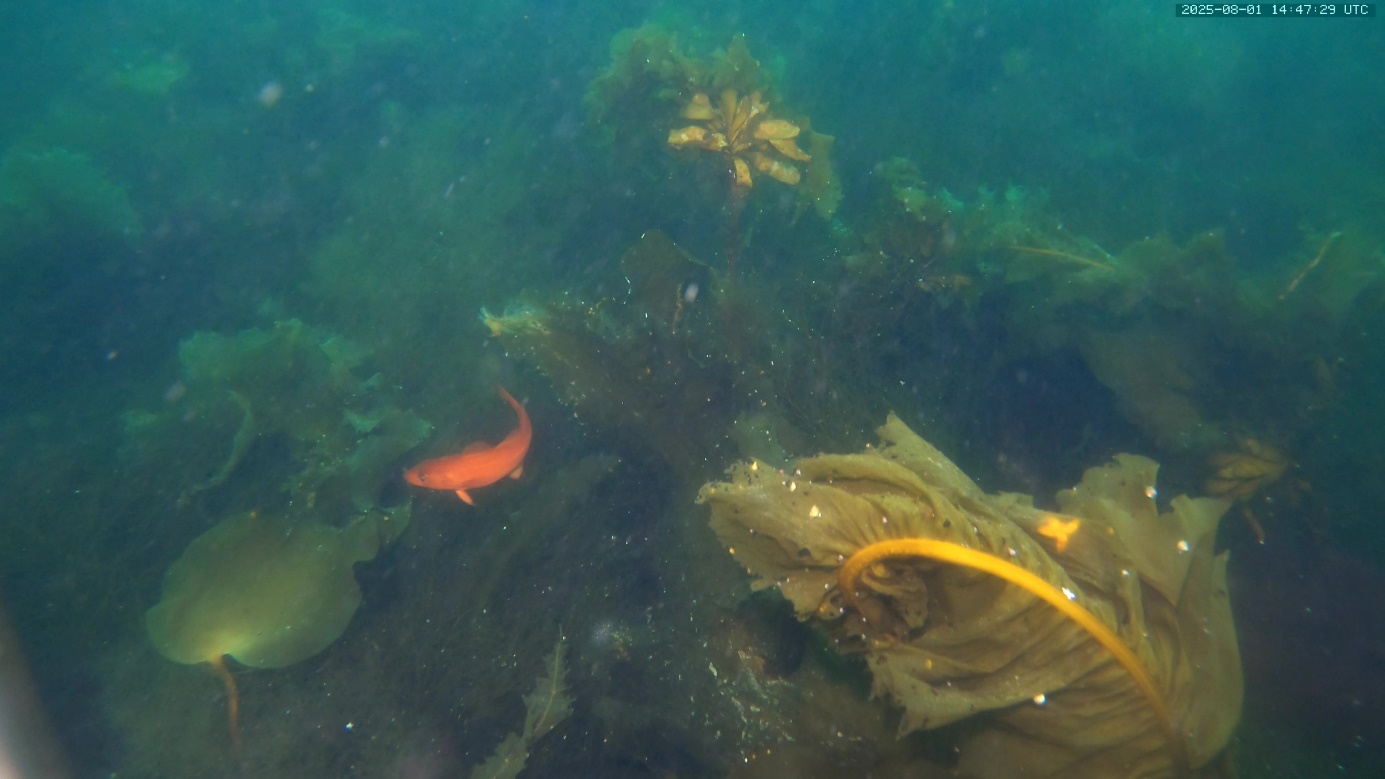
The mapping documented a diverse marine ecosystem closely associated with the fjord's range of habitats and seabed types. Extensive intertidal flats, particularly along the western side of the fjord, are of national importance for birdlife and are used by several red-listed species. Soft-bottom habitats in the intertidal zone also support scattered occurrences of eelgrass. In shallow waters below the intertidal zone, often over soft sediments with scattered stones, frequent occurrences of sugar kelp forests and maerl beds were documented. Both are red-listed habitat types. Smaller occurrences of oarweed (Laminaria digitata) and winged kelp (Alaria esculenta) were also recorded, but no tangle kelp (L. hyperborea) was found. An unusual mixed kelp forest occurring in very shallow water within the intertidal zone around Ressikkä had been mapped previously and was confirmed by the new survey. Few signs of sea urchin grazing on kelp forests were observed in the surveyed areas during summer 2025.
Intertidal seaweed communities are widespread along much of the shoreline. Significant numbers of blue mussels were observed in association with these communities, primarily consisting of juveniles and recent recruits. However, no extensive blue mussel beds were identified, with the exception of a single locality on hard substrate.
The maerl beds surrounding skerries in the central and outer parts of Inner Porsangerfjord supported rich associated biodiversity and function as important nursery areas for Icelandic scallops and numerous other invertebrate species. The maerl was often covered by kelp and other macroalgae. Larger Icelandic scallop aggregations were mainly restricted to the inner parts of Porsangerfjord. Historically known continuous occurrences north of Reinøya were confirmed, and an additional, likely continuous occurrence was recorded south of Reinøya.
The deep soft-bottom basins of Østerbotn and Roddenessjøen are characterized by permanently cold bottom waters (<0°C). These conditions provide habitat for Arctic-associated species, particularly sediment-dwelling infauna that feed on detritus and play an important role in ecosystem productivity. The area is also characterized by relatively dense populations of northern shrimp (Pandalus borealis). In Østerbotn, Roddenessjøen, and along the deeper slopes of Inner Porsangerfjord, relatively dense occurrences of soft corals of the genus Gersemia were documented. Such coral communities are otherwise primarily known from Arctic and sub-Arctic waters along exposed coasts and in deep-sea environments, making the fjord's occurrences particularly unique.
Several sponge species were also recorded, although their abundance and individual size did not meet the criteria for classification as sponge grounds. Coral and sponge occurrences were often associated with glacial deposits and hard substrates, including steep and partly vertical walls. These habitats were surveyed only to a limited extent and therefore represent an important knowledge gap.
The demersal fish community in Inner Porsangerfjord is currently dominated by sculpins, eelpouts (Zoarcidae) and pricklebacks (Lumpenidae), which were frequently observed during the survey. Historically, the local cod stock was of considerable importance to fisheries, but spawning has no longer been observed at the identified spawning grounds within Inner Porsangerfjord. The fjord also supports a local capelin population, with a possible spawning ground located around Sandvik. Inner Porsangerfjord is a key area for a distinct local population of harbour seals.
Over time, Inner Porsangerfjord has experienced several ecological changes, including declines in local fish stocks, sea urchin grazing on kelp forests, and the invasion of the red king crab (Paralithodes camtschaticus). Previous studies suggest that king crab predation may have affected soft-bottom communities in the inner fjord, leading to declines in the abundance and size of larger, slow-growing species typical of Arctic environments and altering overall community composition. Red king crabs occur in high densities in both shallow and deep areas of Inner Porsangerfjord. They prey on a wide range of invertebrates living both on and within the seabed. Studies of benthic communities indicate that king crab predation alters species composition and size structure, with some species declining in response to predation pressure. Slow-growing cold-water species may be particularly vulnerable. The grazing pressure exerted by king crabs in shallow-water habitats has not yet been quantified, but observations showed crabs digging within maerl beds and feeding on Icelandic scallops. This may have implications for the long-term condition of these habitat types. At the same time, king crabs likely have a positive indirect effect on kelp forests through predation on sea urchins.
Temperature records show increasing temperature anomalies in both surface and bottom waters in the outer parts of the study area, highlighting the need for long-term monitoring from a conservation perspective.
Forord
Formålet med kartleggingsarbeidet i indre Porsangerfjorden var å framskaffe utfyllende informasjon om forekomst og utbredelse av utvalgte marine naturtyper i det foreslåtte verneområdet, og dermed gi et tilstrekkelig kunnskapsgrunnlag om marint naturmangfold i lndre Porsangerfjord for utarbeidelse av konsekvensutredning av marint vern.
I forbindelse med utredning av marin verneplan for Indre Porsangerfjord ønsker Statsforvalteren i Troms og Finnmark et solid kunnskapsgrunnlag om fjorden. Statsforvalteren ønsker å få en oversikt over eksisterende kunnskap om forvaltningsrelevante arter og naturtyper i denne delen av fjorden, samt ny kartlegging av et utvalg av naturtyper i området for å utfylle mangler i kunnskapsgrunnlaget.
Rapporten inneholder en sammenstilling av tilgjengelige data på marinbiologisk mangfold i det forslåtte marine verneområde og resultater fra det nye kartleggingsarbeidet.
Sammendrag
Indre Porsangerfjord utgjør den innerste delen av Porsangerfjorden i Finnmark fylke. Området er relativt grunt (hovedsakelig < 100 m), men har en variert bunntopografi med både hard- og bløtbunnsområder, grunne terskler og dypere bassenger ned mot 175 m. Fjorden har også en spesiell hydrografi, som bidrar til at området inngår i den nasjonale verneplanen som en «arktisk fjord».
Havforskningsinstituttet har sammenstilt eksisterende kunnskap om marint mangfold, forvaltningsrelevante arter og naturtyper, og i tillegg gjennomført ny kartlegging sommeren 2025 av et utvalg av naturtyper. Kartleggingen omfattet forekomster av tareskog, tangsamfunn, ålegress, haneskjell, blåskjell og o-skjell, samt koraller og svamp. Totalt ble 65 transekter undersøkt ved hjelp av undervannsvideo.
Kartleggingen dokumenterer et variert marint mangfold nært knyttet til ulike naturtyper og bunntyper i fjorden. Store tidevannsflater, særlig på vestsiden av fjorden, har nasjonal betydning for fuglelivet og benyttes av flere rødlistede arter. Bløtbunnsområdene i strandsonen huser også spredte forekomster av ålegress.
På grunt vann ned fra fjæresonen, ofte over bløtbunn med innslag av små stein, ble det dokumentert hyppige forekomster av sukkertareskog og ruglbunn, begge rødlistede naturtyper, samt mindre forekomster av finger- og stortare. En uvanlig forekomst av tareskog, på svært grunt vann, i fjæresonen rundt Ressikkä er tidligere kartlagt og ble bekreftet gjennom nye funn. Det er ikke funnet stortare i utredningsområdet. Det ble observert få tegn til nedbeiting av tare fra kråkeboller sommeren 2025 i de undersøkte områdene. Tangsamfunn er utbredt langs store deler av strandsonen. I tilknytning til disse ble det observert betydelige mengder blåskjell, hovedsakelig bestående av små individer og rekrutter. Det ble imidlertid ikke påvist sammenhengende blåskjellbunner, med unntak av én lokalitet på hardbunn.
Ruglbunnsområdene rundt skjær i midtre og ytre deler av Indre Porsangerfjord viste et rikt tilknyttet biologisk mangfold og fungerer som viktige oppvekstområder for haneskjell og en rekke andre virvelløse arter. Ruglbunnen var ofte dekket av tare og andre makroalger. Større forekomster av haneskjell er i hovedsak begrenset til den indre delen av fjorden. Historisk kjente sammenhengende forekomster av haneskjell nord for Reinøya ble bekreftet, og det ble i tillegg registrert en (antakelig) sammenhengende forekomst sør for Reinøya.
De dype bløtbunnsbassengene i Østerbotn og Roddenessjøen utmerker seg ved å ha kaldt bunnvann (< 0 °C) året rundt. Disse forholdene danner leveområder for arter med arktisk tilknytning, der særlig infauna som lever av detritus i sedimentene spiller en sentral rolle for økosystemets produktivitet. Området er videre karakterisert av forekomst av en relativt tett rekebestand. I Østerbotn, Roddenessjøen og langs de dypere skråningene i Indre Porsangerfjord ble det også påvist relativt tette forekomster av bløtkoraller av slekten Gersemia. Slike korallsamfunn er ellers hovedsakelig kjent fra arktiske og subarktiske farvann, langs ytterkysten og i dype havområder, og forekomstene i fjorden framstår derfor som særlig unike.
Ulike svamparter ble også registrert, men forekomstene tilfredsstilte ikke kriteriene for naturtypen svampskog når det gjelder tetthet og individstørrelse. Forekomster av koraller og svamper er ofte knyttet til israndavsetninger og harde substrater i fjorden, inkludert bratte og delvis vertikale vegger. Sistnevnte områder ble i begrenset grad kartlagt og kan derfor representere et viktig kunnskapshull.
Bunnfiskesamfunnet i Indre Porsangerfjord domineres i dag av ulkefisker, med innslag av blant annet langebarn, som ble hyppig observert under kartleggingen. Tidligere hadde den lokale torskebestanden stor betydning for fiskeriene, men det er ikke lenger observert gyting på de identifiserte gyteplassene i Indre Porsangerfjord. Fjorden har også en lokal loddebestand som har gyteområde rundt Sandvik. Indre Porsangerfjord er et nøkkelområde for en egen populasjon av steinkobbe.
Indre Porsangerfjord har over tid gjennomgått flere økologiske endringer, blant annet knyttet til nedgang i lokale fiskebestander, beiting på tareskog fra kråkeboller og invasjon av kongekrabbe. Tidligere undersøkelser tyder på en mulig effekt av kongekrabben på bløtbunnssamfunnet i indre Porsangerfjord, ved at større, langsomt voksende arter typiske for arktiske områder går ned i antall og størrelse, og at artssammensetningen i samfunnet endres.
Kongekrabbe forekommer i stort antall både i grunne og dype områder i Indre Porsangerfjord. Kongekrabben beiter på en rekke virvelløse dyr både på og i sedimentet. Studier av bunndyrsamfunnet tyder på at krabben forandrer på arts, - og størrelsessammensetning og noen arter minker i følge av predasjonen. Spesielt langsom voksende kaldtvannsarter kan bli mer påvirket. Beitetrykket i gruntvannsområdene er foreløpig ikke kvantifisert, men det ble observert at krabbene graver i ruglbunn og beiter på haneskjell. Dette kan ha betydning for disse naturtypenes langsiktige tilstand. Samtidig så har krabben sannsynligvis en positiv effekt på tare gjennom predasjon på kråkeboller.
Temperaturmålinger viser økende temperaturanomalier i både overflate- og bunnvann i de ytre delene av utredningsområdet, noe som understreker behovet for langsiktig overvåking i et verneperspektiv.
1 - Innledning
Norge har gjennom FNs naturavtale (Kunming-Montreal-avtalen), vedtatt under Konvensjonen om biologisk mangfold (CBD), forpliktet seg til å verne og bevare minst 30 % av havområdene innen 2030. Utgangspunktet for arbeidet med å utrede vern av Indre Porsangerfjorden er tilrådningene fra "Rådgivende utvalg for marin verneplan” (Skjoldal, 2004) om å utrede vern av 36 sjøområder i Norge.
Indre Porsangerfjord (Figur 1) er en av 12 fjorder som ble inkludert i verneplanen. Her fremkommer det at Indre Porsangerfjord skiller seg vesentlig fra de andre fjordene og omtales som en særegen fjord med hensyn på geologisk utforming og hydrografi. Indre Porsangerfjord er i hovedsak et grunt fjordområde. Utformingen med noe dypere basseng i indre del gjør at det her blir liggende spesielt kaldt vann. Dette gir et arktisk preg til faunaen og det finnes flere høyarktiske arter her.
Indre Porsangerfjorden beskrives slik i tilrådningene fra «Rådgivende utvalg for marin verneplan»: Indre Porsangerfjord ligger i Finnmark. Det er det indre partiet av Porsangerfjorden og utgjør et stort og bredt område med mange nes, øyer og holmer. Ytre grense går fra nordenden av Veineset over til Ginski på østsiden. Det er et relativt grunt fjordområde hvor størsteparten er grunnere enn 100 m. Det dypeste partiet med et største dyp på 175 m er i ytterste del innenfor Veineset. Det finnes også noen partier med dyp på vel 100 m på østsiden lenger inne utenfor Raaddenjarga og i Austerbotn. Det er store grunne partier med tidevannsarealer mange steder og særlig i den indre delen på vestsiden med Vesterbotn og Lakselv.Bunnen består i all hovedsak av bløtbunn med sand, leire og mudder avhengig av dyp og eksponeringsgrad. Det er også partier med skjellsand og berg. Hydrografien er spesiell ved at avkjøling og isfrysing om vinteren danner et tungt og kaldt vann som blir liggende i fordypninger. Dette gir et arktisk preg til området og her finnes mange kaldvannsformer med høyarktiske relikter. I Austerbotn finnes muligens en egen stamme med polartorsk. Det finnes også rike forekomster av haneskjell. De store grunne områdene er viktige raste- og beiteområder for vade- og andefugler.
Området overlapper med den nasjonale laksefjorden som ble etablert i 2003 med formål å beskytte villaksen.
Figur 1. Oversikt over kandidatområde for marint vern i indre Porsangerfjorden. Området omfatter et areal på ca. 400 km2.
2 - Fysisk miljø
2.1 - Topografi og geologi
Indre Porsangerfjorden utgjør indre del av Norges fjerde lengste fjord, Porsangerfjorden, i Finnmark fylke (Figur 1). Fjorden strekker seg over 123 kilometer og har en variert natur både på land og i havet. Indre Porsangerfjorden er omgitt av fjellområder i vest og øst og en bred dal som åpner mot sør. Landskapet er formet under istiden og i fjorden finner vi en del undersjøiske israndavsetninger (Figur 2). Den indre delen av fjorden har en variert bunntopografi med mange grunner og skjær. Innsnevring av fjorden samt grunne områder sør og nordøst for Reinøya danner en terskel som begrenser vannutskifting i denne delen av fjorden. Det finnes også 3 større elver (Stabburselva, Lakselva og Børselva) som tilfører store mengder ferskvann til Indre Porsangerfjord. Størsteparten av Indre Porsangerfjorden er grunnere enn 100 m. Det er store partier med tidevannssletter mange steder og særlig i den indre delen på vestsiden rundt Stabburselva, Vesterbotn og Lakselvområdet, men også i tilknytning til Børselva. Det dypeste partiet, med et største dyp på 175 m, ligger i den ytterste delen innenfor Veineset. Det finnes også to bassenger med dyp rundt 100 m på østsiden, Roddenjarga og Østerbotn, som er karakterisert av lave bunnvannstemperaturer året rundt. Den ytre grensen til foreslåtte verneområde går fra nordenden av Veineset over til Skinski på østsiden (Figur 1 og Figur 2).
Figur 2. Dybde, skyggerelief og israndavsetninger i Indre Porsangerfjord. (Kilde: Norges Geologiske Undersøkelse).
Bunnen i Indre Porsangerfjord består i all hovedsak av bløtbunn med sand, leire og mudder (Figur 3) avhengig av dyp og strømeksponering. Det er også partier med skjellsand og berg. Norges Geologiske undersøkelse (NGU) har kartlagt og modellert sediment-typer i Porsangerfjorden (dypere enn 30 meter) og publisert detaljerte marine grunnkart (https://geo.ngu.no/kart/marin_mobil).
Figur 3. Kartet viser modellert bunnforhold (sediment kornstørrelse) i det foreslåtte verneområdet (Kilde: Norges Geologiske Undersøkelse).
2.1.1 - Israndavsetninger
Det finnes flere israndavsetninger i Indre Porsangerfjord (Figur 2), for eksempel ved terskelen rett utenfor grensen til foreslått verneområde. Disse avsetninger ble kartlagt i Nasjonalt program for kartlegging av marint biologisk mangfold (Bekkby m.fl., 2011; Direktoratet for naturforvaltning, 2007) og kan være et interessant levested for en rekke sårbare arter. Ofte finnes det litt grovere sedimenttyper som sand, grus og stein og som byr på et variert terreng med forhøyninger der særlig filtrerende arter finner et foretrukket levested. Israndavsetninger er ikke definert som en forvaltningsrelevant naturtype etter Bekkby m.fl. (2025).
2.1.2 - Skjellsandforekomster
Skjellsand er en sediment-naturtype som består av grove bunnsedimenter dominert av skallfragmenter fra muslinger, snegler, pigghuder og kalkalger. Disse sedimentene kan variere fra finknust skjellgrus til større skjellbiter og iblant hele skall. Naturtypen forekommer typisk på relativt grunt vann, ofte i områder med moderat til sterk strøm, som forhindrer finmateriale i å legge seg som et tykkere lag. Skjellsand er leveområde for en rekke bunndyr, inkludert børstemark, krepsdyr, mindre skjellarter og filtrerende organismer, og kan også fungere som gyte- og oppvekstområde for flere fiskearter. Den grove sanden gir mange mikrohabitater og god tilgang på oksygen, noe som skiller skjellsand fra mer oksygenfattige finsedimenter. Norges geologiske undersøkelse (NGU) beskriver skjellsand som både en viktig naturtype og en geologisk ressurs, og presiserer at den regnes som ikke‑fornybar på grunn av svært langsom dannelse.
Større forekomst av skjellsand på Norskekysten har blitt modellert av NIVA basert på prøvetaking av NGU i henhold til håndbok 19 (tilgjengelig i naturbase), men Porsangerfjorden ble ikke prioritert den gangen. De øvrige prøvene som er tatt av NGU i Porsanger ble tatt i forbindelse med kartlegging av kornstørrelse (Figur 3), og disse prøvene visste ikke noe skjellsandforekomst. Under kartleggingen i 2025 ble det registrert skjellsand på én videolinje (stasjon 4) på grunt vann, som hovedsakelig bestod av død finkornet rugl og litt større skjellfragmenter. Dette kan muligens indikere noen mindre skjellsandforekomster i Indre Porsangerfjord. Det er imidlertid behov for kartlegging med fysisk prøvetaking for å identifisere sedimenttype og modellering for utvikling av arealdekkende kart.
2.2 - Oseanografi
Porsangerfjorden er en bred og åpen fjord som munner direkte ut i Barentshavet og har god vannutveksling med kysten (Myksvoll mfl. 2012, Svendsen 1995). Vannutskiftning i fjordbassengene regulerer tilførsel av oksygen i dypet, og strømforhold kombinert med vind, skaper vertikal blanding i vannsøylen som er viktig for økologiske prosesser som primærproduksjon og spredning av organismer. Avkjølingen om vinteren fører til vertikal omrøring og homogene vannmasser med lav temperatur på denne årstiden. Vannutskiftning i Indre Porsanger begrenses av tersklene, slik av vannmassene her blir mer isolert fra kystvannet enn lenger ut i Porsangerfjorden. Dette bidrar til at den indre delen av Porsangerfjorden er mer utsatt for effektiv avkjøling om vinteren (Eilertsen & Skardhamar 2006, Mankettikara 2013). Lagdeling om sommeren på grunn av elveavrenning og oppvarming fører til mindre vertikal blanding, slik at det kalde vintervannet i de dype bassengene i Roddenessjøen og Østerbotn kan bli liggende utover sommersesongen.
Hydrografi og strømforhold i Porsangerfjorden modelleres med HI sin hydrodynamiske modell Norkyst (Asplin m.fl., 2020; Christensen m.fl., 2025; Dalsøren m.fl., 2020; Skarðhamar m.fl., 2018; Skarðhamar m.fl., 2026). Modellerte felter av middel/maks/min strøm, temperatur og saltinnhold over fjordbunnen i Indre Porsanger er presentert i figurene 4 - 6. Indre deler av Porsangerfjorden har en tidevannsforskjell på 2 – 2,5 meter mellom lavvann og høyvann. Strømforholdene i indre Porsanger påvirkes av både vind, tidevann, avrenning og vannutveksling over terskelen. Terrengformene i indre Porsangerfjorden gjør at vindretningen over fjorden ofte avviker fra de større regionale mønstrene, og denne delen av fjorden har innlandsklima med lavere lufttemperaturer og andre vindforhold enn i ytre del av fjorden som har kystklima (Cieszyńska & Stramska, 2018). Lokale bunnstrømmønstre er viktig både for transport av næringssalter, organiske og uorganiske partikler, og er viktige for utbredelse av forskjellige naturtyper i denne delen av fjorden. Rundt grunnområder og skjær, spesielt på vestsiden over den grunne terskelen inn i Vesterbotn, er tidevannsstrømmene sterke (Figur 4).
Figur 4.Strømhastighet over bunnen fra Havforskningsinstituttet sin Nordkystmodell for perioden 2018-2020. Venstre figur viser minimumstrøm, figuren i midten viser gjennomsnittlig strøm og figuren til høyre viser maksimal strømhastighet. Strøm har enhet meter/sekund. Merk de ulike tegnforklaringsintervallene i kartene.
Historiske tidsserier med CTD-målinger av temperatur og saltinnhold i Porsangerfjorden fra UiT og HI (Eilertsen & Skarhamar, 2006; Mankettikkara, 2013; Myksvoll m.fl., 2012) er tilgjengelig fra 1980-tallet, og omfatter en stasjon i indre ytre delen av kandidatområde for marint vern og i Østerbotn (Figur 5). Den tette målerserien fra Havmiljødataserien ble avsluttet av UiT i 2019, men er videreført av HI med modellering kombinert med målinger (Skardhamar m.fl. in prep.). Hydrografien i Indre Porsangerfjord er spesiell ved at avkjøling og isfrysing om vinteren danner et tungt og kaldt vann som blir liggende i fordypninger (Figur 5). De østlige bassengene har lave temperaturer over bunnen året rundt, under 4 ºC (Figur 6), mens temperaturene på vestsiden varierer mer (Figur 7), typisk mellom -1 og 9 ºC. Begge steder er temperaturene over bunnen høyest om høsten (oktober/november) og lavest om våren (mars). I Østerbotn er bunntemperaturen om vinteren/våren < 0 ºC og stiger til rundt 3.5 ºC ut på høsten. Data fra tidsserien viser at temperaturen har økt på vestsiden siden 1980 (Vedlegg 1), med variasjoner mellom år og sesonger (Skardhamar m.fl. in prep.). I vintermånedene er områdene helt innerst i Vesterbotn og Østerbotn isdekt, med maksimalt isdekke oftest rundt mars (pers.kom. Megan O’Sadnick). Av og til dannes is i området av Børselvmunningen i kortere perioder. Området preges av kaldere vintre og varmere somre enn ytterst i fjorden (Cieszyńska & Stramska, 2018). Dette kan forsterke sesongmessige variasjoner i både fysiske og biologiske prosesser, som isdannelse og tilførsel av ferskvann fra elver og dermed også saliniteten (Figur 6). Mengden av ferskvannsavrenning varierer med sesonger og med størst avrenning seint vår og tidlig på sommeren. I gjennomsnittet er saltinnholdet generelt lavere i vannet rundt elvemunninger og dermed også i indre vestlige delen av Indre Porsangerfjord (Figur 6, midten) der Lakselva munner.
Figur 5. Temperatur over bunnen i Indre Porsanger, simulert med Havforskningsinstituttets modell Nordkyst for perioden 2018-2020. Venstre figur viser minimumstemperatur, figuren i midten viser gjennomsnittlig temperatur og figuren til høyre viser makstemperatur, fra det dypeste laget i modellen. Temperatur har enhet ºC. Merk ulike temperaturskalaer i de tre kartene
Figur 6. Modellert saltinnhold over bunnen i indre Porsanger, beregnet med Havforskningsinstituttets modell Nordkyst for perioden 2018-2020. Kartene viser minimumsverdier (venstre), gjennomsnittlige verdier (midtre) og maksimale verdier (høyre) over de 2 årene for saltinnhold i det dypeste laget i modellen. Salinitet har enhet psu. Merk de ulike tegnforklaringsintervallene i kartene. I gjennomsnittet er saliniteten over bunn lavere i influensområdene av elvene (midten), men nådde minimums-, og maksimumsverdier varierer sterkere med sesongene i disse områdene, samt at isdannelse om vinteren kan påvirke saltinnholdet.
3 - Kartleggingsarbeid
3.1 - Metodikk
Det ble gjennomført feltarbeid i forbindelse med kartlegging av naturtyper i Indre Porsangerfjord fra 27.07 til 07.08.2025. Det ble tatt 65 videolinjer (transekter) med en slept kamerarigg, som er beskrevet nærmere i Dunlop m.fl. (2020). Linjene hadde en gjennomsnittlig lengde på 500 meter (men varierte fra 150 til 2700 meter) og dekket dybder fra 2 til 157 meter. Linjene ble valgt ut for å dekke mest mulige forskjellige habitater og dybder innenfor utredningsområdet (Figur 7). Linjene ble i utgangspunktet plassert i et randomisert stratifisert design, men det visste seg at begrensninger på grunn av dybde, strøm og vind gjorde det vanskelig å dekke enkelte av de planlagte områdene. Det ble i tillegg lagt ut ekstra videolinjer i et tidligere kartlagt haneskjell-felt, et langt transektområde i tilknytning til Ressikä for å avgrense grunne tareforekomster der (Sivertsen & Bjørge, 2015), samt rundt Reinøya og Mammal der sannsynligheten for å treffe på ruglbunn var størst. Kartleggingsdesignet til feltarbeidet tilsvarer et «punkt-kartlegging langs transekter» (Bryn & Haugland, 2023) og skulle dekke mest mulig ulike dybdeforhold innafor utredningsområde og fokuserer på områder med lite kjent kunnskap fra før. Data fra dette arbeidet kan benyttes til eventuell seinere modelleringsarbeid som produserer arealdekkende kart til naturtyper.
Kartleggingsarbeidet i dette prosjekt tok utgangspunkt i naturtypene definert i håndbok 19 (Direktoratet for naturforvaltning, 2007) samt i de forvaltningsrelevante naturtypene identifisert av Bekkby m.fl. (2021). I den sistnevnte rapporten ble prioriteringen gjort i tråd med føringene i St. meld. 14 (2015–2016), som legger vekt på truede og nær truede naturtyper, naturtyper knyttet til internasjonale forpliktelser, naturtyper som er dårlig kartlagt og naturtyper med viktig økologisk funksjon. Dette omfatter blant annet leveområder for truede og nær truede arter samt naturtyper som er viktige for et stort antall arter. For naturtypene i instruksen etter Bekkby m.fl. (2025) brukes et forvaltningsrelevant minsteareal på 100 m². Dette er det arealet som må til for at en naturtype skal defineres og kartfestes etter NiN. Som hovedregel skal naturtyper som er dannet av én art (for eksempel sukkertareskog) ha en dekningsgrad på minst 25% for å klassifiseres som en naturtype. For Ålegrasbunn iht. instruksen (og håndbok 19) er grensen imidlertid 5% pga. internasjonale forpliktelser, sammenlignet med minstegrense på 25% ålegras for å kunne klassifisere det som undervannseng iht. NiN. Et utvalg grunne og dype forvaltningsrelevante naturtyper ble inkludert i denne kartleggingen (se også Tabell 4). Disse består av:
Enkeltfunn av arter som danner disse naturtyper ble også registrert. Koralldyr som ikke danner definerte naturtyper under nevnte rammeverk ble også inkludert i kartleggingen, blant annet anemoner og bløtkorall. En teknisk forutsetning for at naturtypene kunne bli kartlagt med valgt metode, dvs. med en sleperigg fra småbåt, var at de fantes dypere enn 5 meter på mer eller mindre slakt terreng.
Observasjonene ble logget med hjelp av et «live» kamera og HI sin egen annoterings-software «Seabed field observer» (SFO). Kamerariggen var i tillegg utstyrt med lys og et GoPro-kamera som leverte mer høyopplysende HD video, og en parallell laser (Sea Beam Laser™ 20 fra Laser Tools Co) som dessverre ble ødelagt under femte dykk. Fra lasere kunne bredden av synsfeltet til kameraet bestemmes i de første 5 videoene. Laserpunktene ble annotert i annoteringsverktøyet Biigle hvert 30. sekund. Bredde på synsfeltet ble deretter beregnet, med et gjennomsnitt på 1 m (± 0,3 SD) og en variasjon fra omtrent 0,5 m til 1,7 m, avhengig av kameraets høyde over bunnen. Kamerahøyden ble justert med vinsj, men i ujevnt terreng førte dette tidvis til at havbunnen kom for langt unna. Disse seksjonene ble derfor annotert som «ingen observasjon». For å oppnå presise tetthetsestimater av arter trenges det både fungerende lasere og som regel annotering av video i etterkant, siden det stilles høyere krav om kvalitet og hastighet. Feltarbeidet ble gjennomført fra en leiebåt av typen Viknes sjark 1030 (11m) og det ble forsøkt å taue kamera med sakte fart rundt 0.5 knop, men dette var sjelden mulig på grunn av strøm. Det ble derfor ofte valgt å drifte med båten i strømretningen. På 3 videolinjer i grunne områder (< 3 m) ble det tatt i bruk en jolle, der et GoPro kamera ble montert under båten. Disse videoene ble annotert for naturtyper i etterkant. På grunn av dårlig vær og vind ble tre planlagte videolinjer i de dype områder i Østerbotn ikke gjennomført. Dette kan i en viss grad svekke kunnskapsgrunnlaget på større forekomst av epifauna (som for eksempel bløtkorall). Østerbotn har derimot rent mudderbunn (slam), og forekomst av korallhager og svampsamfunn er mer knyttet til forekomst av små stein. Det finnes også en omfattende undersøkelse av organismesamfunn i Østerbotn og Roddenes med hjelp av grabb, som har et mindre prøvetakingsareal, men fokuserer på fauna som lever inn i sedimentet (se avsnitt 4.4).Posisjonene til båten ble registrert hver sekund med en håndholdt Garmin GPS-navigasjonsenhet og observasjonene ble georeferert i etterkant. Sleperiggen var som regel posisjonert rett under båten, men på dype stasjoner eller på lokaliteter med mer strøm lå sleperiggen bak båten, og GPS posisjonene var dermed mindre nøyaktige. På målestokken 1:20 000 som ble brukt i prosjektet, vil disse avvikene være minimale.
På hver videolinje ble det logget naturtype og dekningsgrad i kategoriene 1-4 for de grunne naturtypene (Tabell 1). For korall- og svampforekomster ble det ikke kvantifisert dekningsgrad i felt, siden definisjonen for disse habitatene (etter for eksempel OSPAR) som oftest bruker tettheter av indikator artene per areal istedenfor en dekningsgrad, og kriteriet er ikke likt for alle naturtypene. Siden lasere ikke var tilgjengelige for å kvantifisere arealet for alle videolinjer, ble tilstedeværelse/fravær av korall- og svampesamfunn registrert i felt basert på faglig skjønn og der det var minst en observasjon hver 5. sekund på en fart på rundt 0.5-1 knop (Mareano). I tillegg ble det logget forenklete bunntyper (Tabell 2), terreng (flat, svak skråning, bratt), andre arter som var til stede og noen tilleggsvariabler som gir mer informasjon om tilstanden til registrert naturtype (Tabell 3). Metodikken for kartlegging av utvalgte marine naturtyper og for vurdering av deres tilstand er nylig oppdatert i tråd med Miljødirektoratets instruks (Miljødirektoratet, 2026). Kartleggingen av grunne naturtyper i denne rapporten tok utgangspunkt i en utkast til metodikken fra faggrunnlaget (Bekkby m.fl., 2025), men ble tilpasset ettersom det forelå en del begrensninger med hensikt til tidsbruk og metodene for registrering. Tabell 5 og 6 (Vedlegg 2) gir en oversikt over gjennomførte videolinjer, observerte arter og naturtyper og tilleggsvariabler registrert. Det ble tatt prøver av rugl for genetisk analyse på tre lokaliteter, men disse er ikke analysert enda.
Mengden av naturtypen
Tetthetsklasse
Dekningsgrad
Fravær
NA
0 %
Kun få individer
1
1-5%
Spredt forekomst
2
5-25%
Middels tett
3
25-50%
Tett/heldekkende/dominerende
4
>50%
Tabell 1. Registrering av naturtypene og deres tettheter under kartlegging i Indre Porsangerfjorden. Modifisert etter Bekkby m.fl. 2025. Om ikke tettheten ble kvantifisert registreres naturtypen som «til stede».
Fjell/blokk
Sand
Stein (<100cm)
Skjellsand
Grus (<2cm)
Bløtbunn
Tabell 2. Substrattyper og eksempler registrert under kartlegging i Indre Porsangerfjord
Beskrivelse
Tetthetsklasse
Dekningsgrad
Mengden trådalger
Fravær
NA
0 %
Kun få individer
1
1-5%
Spredt forekomst
2
5-15%
Middels tett
3
15-50%
Tett/heldekkende/dominerende
4
>50%
Fremmede arter
Forekomst av kongekrabbe
Ja/Nei
Antall
Mengden kråkeboller
Fravær
NA
0 %
Kun få individer
1
1-5%
Spredt forekomst
2
5-15%
Middels tett
3
15-50%
Tett/heldekkende/dominerende
4
>50%
Mengde døde kalkalger (rugl)
Fravær
NA
0 %
Enkelt-individer/spredt
1
<15%
Vanlig/middels tett
2
15-50%
Tett/heldekkende/dominerende
3
> 50%
Mengde døde skjell
Ingen
NA
0 %
Vanlig/middels tett
1
1-50%
Tett/heldekkende/dominerende
2
>50%
Tabell 3. Tilleggsvariabler registrert for hver videolinje under kartlegging i Indre Porsangerfjord. Modifisert etter Bekkby m.fl. 2025.
Figur 7. Kart over videolinjer (transekter) tatt under kartleggingen av Indre Porsangerfjorden i juli og august 2025. Røde linjer viser slepestrekene og tall tilsvarer stasjonsnummer. Målestokk 1:210000.
4 - Marint mangfold og naturtyper
Kapitlet gir en samlet gjennomgang av kunnskapsstatus for det marine mangfoldet i Indre Porsangerfjord, med vekt på forvaltningsrelevante arter, viktige marine ressurser og ny kunnskap om bunndyrsamfunn.
4.1 - Plankton
Primærproduksjonen i vannsøylen fra mikroskopiske alger danner et viktig næringsgrunnlag for både dyreplankton og bunndyr. Subarktiske økosystemer er preget av en tydelig sesongvariasjon i produksjonen av planteplankton, med langt høyere biomasse om våren og sommeren enn i den mørke vinterperioden. Begynnelsen av vårblomstringen skjer vanligvis tidlig i april i indre deler av Porsangerfjorden og omtrent en måned seinere er en stor del av biomassen fra planteplankton i ferd med å synke ned til bunnen. Undersøkelser fra 2014 som så på sammensetning av plankton i Indre Porsangerfjorden visste at området dominertes først og fremst av små kiselalger (Figur 8) og er dermed forskjellig fra den ytre delen av fjorden der Phaeocystis pouchetii dominerte planktonoppblomstringen (Hegseth m.fl., 1995; Priou, 2015). Den årlige netto primærproduksjonen i Porsangerfjorden er modellert av HI sin NORWECOM modell (Samuelsen m.fl., 2015; Skogen & Søiland, 1998) og ligger på rundt 50-100 g C m⁻² y⁻¹ (for perioden 2021-2024), med litt høyere verdier på vestsiden av fjorden. Sammenlignet med Barentshavet er disse verdiene innafor estimatet gitt i Castro de la Guardia m.fl. (2023) for den atlantiske sone av nord-vest Barentshavet (79–118 g C m−2 yr−1), og høyere enn i subarktisk sone (74–82 gC m−2 yr−1) og arktisk sone (19–47 gC m−2 yr−1). Dyreplanktonet i indre Østerbotn skilte seg også fra det i ytre fjord der større hoppekreps som Calanus finmarchicus og Metridia longa dominerte (Priou, 2015), med Pseudocalanus acuspes som dominerende planteeter i det indre bassenget om våren, og dominans av Microsetella norvegica om høsten. Dyreplankton drar fordel av høye konsentrasjoner av kiselalger og «marin snø» i denne delen av fjorden (Mooney m.fl., 2023). Marin snø er synkende, organisk material av døde plante- og dyreplankton, avføring og mikrober som frakter karbon og næringsstoffer fra havoverflaten ned til dypet, og dermed en sentral del av den biologiske karbonpumpen. Dette materialet blir en viktig del av detritusbaserte næringskjeder i kystøkosystemer. I de dype bassengene med bløtbunn dominerer arter som ernærer seg av slike partikler, som for eksempel den tallrike børstemarken Spiochaetopterus typicus (Figur 9).
Figur 8. Mikroskopiske kiselalger er en del av planteplankton som bidrar til marin snø og karbonpumpen. Kiselalger har et silikatskall som øker synkehastigheten. Bildet viser slekten Chaetoceros. Foto: Algelaboratoriet / Havforskningsinstituttet
Figur 9. Børstemarken Spiochaetopterus typicus (rød pil) er talrik på mudderbunn i den østlige delen av Indre Porsangerfjord. Den bygger rør som sitter gravd ned i sedimentet og samler inn næringspartikler med sine tentakler. Her sammen med dypvannsreken og bløtkorallen av slekten Gersemia.
4.2 - Fisk og krepsdyr
De historiske fiskeriene i Porsangerfjorden var tidligere dominert av torsk, sei, rødspette og lokale sildestammer. Innerst på vestsiden av fjorden, i Brennelvfjorden, ble det for eksempel fisket sild med garn og not gjennom råker i isen. Fra 1950-tallet økte mengden sildesnurpere i fjorden, og fisket nådde en topp mot slutten av 1960-tallet. Etter kollapsen i bestanden av norsk vårgytende sild i Norskehavet ble i tillegg den norske sildeflåten i en kort periode sluppet inn i de nordnorske fjordene før fisket igjen ble stanset (Bogstad m.fl., 1995; Hagen, 1983). I Porsangerfjorden fortalte folk at fjorden om høsten var opplyst som en liten landsby av sildesnurpere som samlet silda med lyskastere i høstmørket (Persen & Andersen, 2011; Strand m.fl., 2020a). De siste observasjonene av stor sild i fjorden ble gjort i forbindelse med et kortvarig oppsving i torskefiskeriene tidlig på 1990-tallet (Strand m.fl., 2020a). I dag forekommer det fortsatt sild i Porsangerfjorden, men denne stammer fra egg gytt av norsk vårgytende sild langs Nordlandskysten, som driver som yngel inn i Barentshavet og Finnmarksfjordene i løpet av våren og forsommeren (Holst & Slotte, 1998). Silda forlater fjorden igjen etter ett til to år, og det er i dag under prøvetaking med trål svært sjelden å finne individer større enn 10–15 cm (Pedersen m.fl., 2018).
På slutten av 1960-tallet oppdaget laksefiskere i de indre delene av fjorden at notfangstene i økende grad ble dominert av kråkeboller (Hanssen, 1986). Dette førte til nedbeiting av store tareskogområder langs kysten, fra Nord-Trøndelag i sør til Murmansk i nordøst (Norderhaug & Christie, 2009; Sivertsen, 1997). Det årvisse sommerfisket etter stabb- og storsei i Porsangerfjorden opphørte også på 1980-tallet, etter en lengre periode der seisnurperne kastet not helt inn i fjæresteinene rundt Reinøya (Strand m.fl., 2020a).
Rundt 2015 begynte den invaderende kongekrabben for alvor å gjøre seg gjeldende i fiskeriene og som kråkebollepredator. Dette førte til at tareskogen kunne reetablere seg på tidligere nedbeitete lokaliteter i Indre Porsangerfjord (Christie m.fl., 2024) uten at det har gitt tilsvarende effekt på rekrutteringen av lokal torsk, som fortsatt bare forekommer i beskjedne mengder sammenlignet med tidligere. Den lokale torsken har hatt stor betydning for bosetting, kultur og næringsliv, og fortjener særskilt omtale. Gjennom intervjuer med fiskere og lokale fjordbrukere er det identifisert fem gyteplasser på vestsiden av Porsangerfjorden (Strand m.fl., 2020a). Det har ikke vært observert gyting på de tre innerste feltene de siste 40–50 årene. To av de forlatte gyteplassene ligger innenfor det foreslåtte marine verneområdet (Jatka og Billefjord, Figur 10 ), mens det tredje ligger like utenfor. Tidligere ble det fisket torsk på de indre gytefeltene om vinteren. Etter endt gyting på vestsiden, rundt 1. april, vandret torsken over til østsiden av fjorden for å beite på den lokale loddebestanden, og et nytt fiskeri utviklet seg og varte til ut juni. I dag foregår det verken fiske på de tre innerste gyteplassene på vestsiden eller på loddebeitende torsk på østsiden. Lokale fiskere har identifisert områdene utenfor Sandvik innafor kandidatområde for marint vern ( Figur 10 ) som gyteområde for lokal lodde (Søvik m.fl., 2020). Denne lokale loddebestanden er hovedsakelig knyttet til indre delen av fjorden, der den finner også det kaldeste vannet. Nyere undersøkelser tyder på at loddestammen i fjorden er liten i dag (Strand m.fl., 2020a). Også tobis (havsil) er vanlig forekommende i Indre Porsangerfjord, og representerer det viktigste byttedyret hos småsei i grunne områder om høsten. Både laksefiskene og fugler beiter i stor grad på slike små fisk som lodde og sil.
I Porsangerfjord 3.0-prosjektet er det utviklet en plan for å gjenoppbygge den indre, lokale gytebestanden av torsk. Foreslåtte tiltak omfatter etablering av en gytemerd med lokal, innfanget og oppfôret torsk i en tidligere gytefjord, for å sikre tilførsel av befruktede egg til et sentralt retensjonsområde. Planen inkluderer også etablering av en tarepark som løfter produksjonen ut av rekkevidden til ulker, samt etablering av et marint verneområde for å hindre ny nedfisking av bestanden (Strand, 2019). Økt forekomst av stor torsk vil sannsynligvis kunne bidra til å rekolonisere øvrige gyteplasser (Olsen m.fl., 2023).
Figur 10. Tidligere kartlagt gytefelt til torsk og oppvekstområder til torsk, hyse og sei i Indre Porsangerfjord. Kilde: Fiskeridirektoratet.
Polartorsk ( Boreogadus saida ), en arktisk art som er rødlistet i kategor sterk truet (EN) (Artsdatabanken, 2021), ble registrert i Østerbotn i 1967 og igjen i 1997 (Christiansen & Fevolden, 2000) men har ikke blitt registrert på senere tokt. I tillegg til torskefiskene finnes et variert bunnfiskesamfunn i Indre Porsangerfjord, inkludert uer og flere flatfiskarter (rødspette, kveite, gapeflyndre og smørflyndre), samt en rekke arktiske arter i dypbassengene. Disse omfatter blant annet ulkefisk, nordlig ålebrosme, ringbuk og tiskjegg (Søvik m.fl. 2020). Ålesbrosmer er en gruppe med mange arter som lever mest i Arktiske strøk. Nordlig ålebrosme var rødlistet som bestand på rødlista 2006, men ble tatt ut av rødlista i 2010 fordi det da ikke ble foretatt egne vurderinger av bestander av fisk. Ulkefiskene utgjør en betydelig andel av fiskebiomassen i indre fjord (Pedersen m.fl., 2018) og spiller sannsynligvis en sentral rolle som predatorer på nylig bunnslått torske- og seiyngel om høsten (Pedersen m.fl., 2020; Strand m.fl., 2020a). Samtidig har bestanden av gråsteinbit gått tilbake kraftig og er i dag nær funksjonelt fraværende, noe som kan ha bidratt til økt predasjonspress fra ulker (Strand m.fl., 2020b).
Kartleggingen vår i 2025 visste spesiell høy tetthet av langebarn (Fam. Lumpenidae) og ålebrosmer i de dype bassengene med mudderbunn på østsiden. Både langhalet,- og tverhalet langebarn ble observert. Det er derimot vanskelig å skille de ulike artene som tverrhalet- og rundhalet langebarn fra videoobservasjoner. Den sistnevnte er bare kjent fra Svalbard. Ulkefisker var også vanlig å observere både på dype og grunne områder under kartleggingen. Selv om det ikke ble kvantifisert i denne studien så ble det observert jevnlig med små torskefisk i tareskog (Figur 25).
Indre Porsangerfjorden skiller seg fra andre fjorder ved svært høye tettheter av dypvannsreke ( Pandalus borealis ) og en særegen bestandsstruktur (Zimmermann m.fl., 2023). Rekene forekommer hovedsakelig i de kalde, dype bassengene i den østlige delen av fjorden, hvor lave temperaturer gir langsom vekst, men høy overlevelse som følge av lavt predasjonstrykk (Pedersen m.fl., 2018; Zimmermann m.fl., 2023). I dette området er det i hovedsak ulker og små torsk som fungerer som predatorer på reker. Reken ble også registrert som den hyppigste arten under denne kartleggingen, og preger samfunnet på bløtbunn i nevnte området. Det foregår i dag et begrenset kommersielt teinefiske etter reker i indre fjord, mens bunntråling fortsatt er forbudt (Haugland m.fl., 2023).
Et område som overlapper med det foreslåtte marine verneområdet i Porsangerfjorden, er også avsatt som nasjonal laksefjord, med viktige bestander av atlantisk laks, sjøørret og sjørøye fra Stabburselva, Lakselva, Børselva og Brennelva . Sjøørret bruker kystnære, grunne soner med for eksempel tang og tare i fjordene som beiteområder og f ølge byttedyr som sild og småsei. Noen individer trekker langt ut i fjorden, men vender i stor grad tilbake til hjemvassdraget. Sjørøye vandrer sjelden mer enn 20 til 30 kilometer fra elva hvor den vokste opp og beiter i brakkvann og strandsonen rundt elva der den er knyttet til. Korte beiteperioder i sjøen er svært viktig for overlevelsen under det første oppholdet i saltvann vokser den mye, siden de reduserer beiting i elvene om vinteren (https://lakseelver.no/nb/news-2015/sjoroye). De senere årene har det vært et betydelig innsig av pukkellaks, en fremmed art som kan representere en økologisk utfordring for de stedegne bestandene (Thorstad m.fl., 2024).
4.3 - Sjøfugler og pattedyr
Indre Porsangerfjord, med sitt komplekse system av strandsoner, fjære‑ og gruntvannsområder, elvemunninger, holmer, sund og sterke tidevannsstrømmer, regnes som et av Norges viktigste våtmarksområder for fugl. Området er et viktig raste- og beiteområde for ande‑, gåse‑ og vadefugler. Stabbursnes naturreservat, som omfatter de store bløtbunnsområder i strandsonen på vestsiden av fjorden, ble etablert i 1983. Selve Stabbursneset består av et omfattende delta av sand og grus, avsatt av Stabburselva mot slutten av og etter siste istid. Området benyttes av ender, gjess og vadere gjennom store deler av året, og har stor funksjonell betydning både som beite og rastelokalitet under trekk, fjærfellingsområde for ender, og som overvintringsområde, særlig for ærfugl (Somateria mollissima). Strandengene brukes i stor grad av grasender og gjess, hvor krikkand, stokkand, brunnakke, sædgås og dverggås forekommer i størst antall. En hyppig trekkfugl er den arktiske arten polarsnipe (Calidris canutus islandica), der det er registrert flokker på opptil 30 000 individer. Stabbursnes (Valdakmyra) er ett av de viktigste beite og rasteområde til den kritisk truete dverggåsa (Anser erythropus) og flokkene som raster her utgjør en svært stor andel av gjenværende vill bestand i Europa (Øien & Aarvak, 2008). Andre rødlistede eller nær truede arter som bruker området er sædgås, vipe, brushane og storspove som hekker i området. Fiske-, hette og gråmåke, alle arter som har hatt en betydelig nasjonal bestandsnedgang (norsk rødliste for arter) bruker området enten som hekkeområde eller rasteplass. Myrsnipe og lappspove opptrer i betydelige antall, sammen med arter som tjeld, sandlo, og steinvender. Stedfestede observasjoner over alle rødlistete arter og arter av nasjonal forvaltningsinteresse i Indre Porsangerfjord kan også finnes i artsdatabanken sine kartløsninger https://okologiskegrunnkart.artsdatabanken.no/.
Figur 11. Steinkobbe i Indre Porsangerfjord i 2021. Foto: Michael Poltermann / Havforskningsinstituttet.
Den indre delen av Porsangerfjord har en egen populasjon av steinkobbe (Phoca vitulina) (Figur 11) som er genetisk forskjellig fra resten av Finnmark (Quintela m.fl. under arbeid). Bestanden ble estimert til ca. 200 dyr i 2021 (Havforskningsinstituttet, pers.med. Kjell T. Nilssen). Det har blitt gjennomført merking av steinkobber med GPS/GSM-sendere i Porsangerfjorden. Resultatene viste at steinkobbene stort sett holdt seg i den indre delen av fjorden, sør for Hamnholmen til de indre områdene i Vester-og Østerbotn. Steinkobbene har faste liggeplasser på Valdaksteinene (Stabbursnes), på Riveskjær mellom nordenden av Reinøya og Børselv, og på holmer og skjær mellom sørenden av Reinøya og Lonkeneset. Kobbene kan også observeres på land ved Hansnes helt sør i Østerbotn og på østsida av Roddenjarga. Om vinteren, når Østerbotn er islagt, kan kobbene også bruke fjordisen som liggeplass (Ramasco m.fl., 2017).
Steinkobbene kaster (føder) unger på skjær og holmer i løpet av juni. Hoene får en unge som dies i to-tre uker. Ungene følger mora utover sommeren og lærer seg etter hvert å finne mat på egen hånd. I august har ett år og eldre steinkobber sin årlige hårfellingsperiode, hvor de skifter pels. De samler seg i større flokker og bruker mye tid på land. Det er derfor denne perioden egner seg best for bestandstellinger av steinkobber. Steinkobbe er topp-predator i næringsnettet i Porsangerfjorden (Pedersen m.fl., 2018) og den jakter etter mat nært land, i og over tareskog og i strømrike sund. Steinkobbe spiser gjerne små fisk (5-30 cm) av små arter og yngel av større arter. Tidligere diett-studier i Porsangerfjorden viste at spesielt ulker utgjør en stor andel ca. 60% av dietten (Pedersen m.fl., 2018; Ramasco m.fl., 2017). Småtorsk, sild og lodde er også på menyen, men utgjorde en mindre andel av dietten i det undersøkte tidsrommet i 2009-2011. Dietten varierte med tilgjengeligheten av matressurser i løpet av året (Ramasco m.fl., 2017). Havisen om vinteren i Østerbotn fungerte begrensende for tilgang til små pelagiske fisk.
HI kartlegger og teller bestandene av steinkobbe årlig i delområder langs kysten, slik at det oppnås et landsdekkende estimat for antall steinkobber omtrent hvert femte år. Steinkobbene forvaltes i samsvar med en forvaltningsplan fra 2011, hvor formålet er å sikre livskraftige selbestander i de naturlige utbredelsesområder langs kysten. Total jaktkvote er ca. 5% av høyeste telling i de ulike fylkene. Årlig jaktkvote har siden 2022 vært totalt 60 steinkobber for hele Finnmark. Det er Finnmark Fylkeskommune som forvalter jakten på steinkobbe i Finnmark. Forvaltningsplanen for steinkobbe fra 2010 er under evaluering. Det var ikke genetisk kunnskap om norske steinkobber da planen ble utformet. Havforskningsinstituttet har siden 2011 samlet inn DNA-prøver fra steinkobbeunger i de viktigste kasteområdene langs hele norskekysten. De siste innsamlingene av DNA-prøver ble gjort i Finnmark i juni 2025. DNA-prøvene har blitt analysert og resultatene er sammenfattet i en artikkel som sendes for publisering tidlig i 2026. De genetiske resultatene vil bli brukt som grunnlag for justering av forvaltningsområdenes størrelse.
Det er også vanlig å observere havert (Halichoerus grypusi) i indre deler av Porsangerfjorden, men stort sett få individer (Pedersen m.fl., 2018). Havert har kasteområde på Store Tamsøy, ytterst i Porsangerfjorden. Under hårfellingsperioden midt på vinteren kan det samle seg mange haverter i de ytre områdene i Porsangerfjorden, sannsynligvis også havert fra de andre havertområdene i Finnmark og fra russiske kolonier på den nordlige kysten av Kolahalvøya. Havert er rødlistet i kategori sårbar (VU) (Artsdatabanken, 2021).
I strandsonen i fjæra både på kysten og på øyene kan det ofte observeres oter (Lutra lutra). Bestanden i Nord-Norge vurderes som stabil, men oteren er fremdeles totalfredet (Artsdatabanken, 2025).
4.4 - Bunnsamfunn
Indre Porsangerfjord har et særpreget marint mangfold. Fjorden inneholder en variert bunntopografi med både hard-, og bløtbunnsområder, grunne terskler og dypere bassenger. Store tidevannsflater huser samfunn av børstemark, muslinger og krepsdyr, som utgjør et viktig næringsgrunnlag for et rikt sjøfugleliv. De dype bassengene på østsiden fungerer som leveområder for bunnarter med arktisk tilknytning, mens grunnere områder støtter tang-, tare- og smådyrsamfunn.
Indre Porsangerfjord med sin spesielle hydrografi huser lokale og trolig isolerte bestander av kaldtvannsarter (Fuhrmann m.fl., 2015; Oug & Fuhrmann, 2013; Søvik m.fl., 2020) og kan fungere som et refugium for disse artene. For eksempel, bunnssamfunnet i indre østlige delen av fjorden (Østerbotn, Laiva og Roddenes) skiller seg markant fra samfunnet i resten av fjorden (Fuhrmann m.fl., 2015). Bløtbunnsfauna er her preget av børstemark og muslinger med høy biomasse (Figur 12) og sekundærproduksjon sammenlignet med resten av fjorden (Fuhrmann m.fl., 2015; Oug & Fuhrmann, 2013). Produksjons-til-biomasse verdier (P/B ) til bunnsamfunnet er i gjennomsnitt også lavere, det vil si dyrene vokser saktere og kan være mindre robust mot forstyrrelser (Fuhrmann m.fl., 2017). Bløtbunnssamfunnet i de dype østlige bassengene er dominert av flerbørstemark (Figur 12), særlig den nordlige børstemarken Spiochaetopterus typicus, som antakelig kan leve opp til 8 år (Gagaev, 2023). Flere av nordlige artene som vanligvis finnes i Arktis har mest sannsynlig isolerte bestander i indre Porsangerfjord. Dette gjelder for eksempel muslingen Yoldia hyperborea og piggishavsreken Sclerocrangon ferox som ble observert i tidligere undersøkelser (Bjørge & Jørgensen, 2013; Oug & Fuhrmann, 2013), men funnene er ikke bekreftet i nyere tid. I tidligere rødliste var arten vurdert som sterkt truet da forekomst i Norge var begrenset til Porsanger og Varangerhalvøya. I 2020 er sjøområdene rundt Svalbard tatt med i rødlistevurdering, og her er arten svært vanlig (artsdatabanken). Flerbørstemarken Cistenides granulata er en annen art med arktisk tilknytning påvist i Østerbotn (Oug & Fuhrmann, 2013) og er vurdert til kategorien nært truet NT. Arten er rødlistet på grunn av sin begrenset forekomstareal, i kombinasjon med pågående nedgang i habitat (artsdatabanken).
Til sammen ble det registrert rundt femti arter i dette området (Oug & Fuhrmann, 2013) hvilket samsvarer med det som er kjent fra andre indre fjordområder i Nord-Norge.
Figur 12. Biomasse for hver hovedgruppe (g per m2 ) av organismer fra grabb undersøkelser i den indre delen av Porsangerfjorden i 2006, 2010 og 2011. Varia består av dyr fra ulike, mindre dominante hovedgrupper som for eksempel Sipuncula. Figur: Marie Runhovde
Figur 13. Kart over grabbprøvene tatt i undersøkelser av bløtbunnssamfunn i Indre Porsangerfjord vist i Figur 12. Stasjonene stemmer overens med Oug & Fuhrmann (2011), og Fuhrmann m.fl. (2015) og ble også prøvetatt i 2025 der resultatene blir opparbeidet i en masteroppgave (Runhovde, 2026).
Det har blitt gjennomført flere bomtrålundersøkelser av epifauna (dyr som lever på toppen av sedimentet) mellom 2017 og 2019 (HI) og noen av disse resultatene er publisert i Mérillet m.fl. (2022) og Søvik m.fl. (2020). Undersøkelser viser at antall individer og biomasse i indre deler av Porsangerfjorden er mye høyere, mens selve antall av arter er noe mindre eller sammenlignbart enn det som finnes i ytre delen av fjorden. Den dominerende dyregruppe i disse undersøkelser var pigghuder (Echinodermata), og særlig sjøstjernen Ctenodiscus crispatus var tallrik på mudderbunn. Søvik m.fl. (2020) peker på at biomassen til større epifauna-arter har blitt kraftig redusert i prøvene over tid, men at dette må undersøkes nærmere. De indre bassengene huser en høy biomasse av dypvannsreker (Pandalus borealis).
Figur 14. Ishavsreken Sclerocrangon ferox er vanlighvis utbredd i arktiske farvann og har sannsynligvis en isolert bestand i østlige delen av Indre Porsangerfjord. Her tatt i Porsangerfjorden i 2006.
Mens ytre Porsangerfjorden har større ansamlinger av sårbare arter som svamp og noen funn av større hornkorall (risengrynkorall og sjøtre) så er indre deler av Porsangerfjorden preget av bløtkorall på større dybder (Søvik m.fl., 2020) ( se avsnitt 4.12.1).
Figur 15. Hardbunnsamfunn med anemoner (Metridium senile), mosdyr og svamp forkommer gjerne på skråninger og overheng, her fotografert under et dykk på Laiva. Foto: Bjørn Gulliksen.
Hardbunnshabitater, spesielt strømutsatte vegger, byr ofte på et rikt samfunn av filtrerende organismer, blant annet mosdyr, hydroider, svamp og anemoner (Figur 15). Disse habitatene har ikke blitt kartlagt i Porsangerfjorden fordi det kreves utstyr som ROV for å kunne filme langs vertikale vegger, men observasjoner fra dykkere forteller om rike forekomster (pers. komm. Bjørn Gulliksen). Fra 2010 har også kongekrabben økt i Indre Porsangerfjord, og denne arten utgjør nå en av de viktigste predatorene til en rekke bunndyr (se avsnitt 4.3).
Samlet sett bidrar kombinasjonen av boreale og arktiske bunndyrarter til et særegent og økologisk verdifullt bentisk samfunn, som gjør Indre Porsangerfjord relevant både som referanseområde og som et naturlig laboratorium for å følge økologiske endringer over tid.
4.4.1 - Sammendrag fra kartleggingen 2025
En oversikt over gjennomførte videolinjer, og observasjonene av artene og naturtyper finnes i vedlegg Tabell 5 og 6 (Vedlegg 2). Totalt ble det registrert 84 ulike epifauna taksa, fra bunndyr til fisk. Dette er imidlertid en sterk underregistrering av biologisk mangfold i Indre Porsangerfjord. Dette skyldes at bare noen få arter kan oppdages og identifiseres på video og at registrering av naturtyper ble prioritert.
Bunntypen var ofte avgjørende for hva slags fauna som var til stede. De ulike bunntypene (Tabell 2) ble registrert langs videolinjene, som oftest med innslag av blandingsbunn. Sandbunn ble observert oftest (rundt 30% av observasjonene) og var til stede på de fleste grunne videolinjer < 30m. Grunne områder med sandbunn var preget av tang og sukkertare, fjæremark og små blåskjell. Bortsett fra de vanlige tareartene (sukkertare, butare, fingertare) og tang ble det observert mye kjerringhår og diverse trådformede rød-, og grønnalger. Bløtbunn, gjerne en blanding av mudder og sand, var også vanlig, både på grunnere områder og i de dype bassengene der sedimentene ble finere og var preget av gravestrukturer som viste aktivitet fra infauna. Haneskjell, anemoner i slekt Hormathia og bløtkorall (Gersemia sp.) var vanlig i de dypere områder > 20 meter på blandet bunn med ofte en høyere andel av grus. På blandet bunn med blokk, stein og grus, for eksempel på israndavsetningene, ble det funnet et rikt samfunn av filtrerende organismer av mosdyr, sekkedyr, rur og svamper (se avsnitt 4.14). Også anemoner og bløtkorall var utbredd på slike sedimenter (se avsnitt 4.13). Medusahode Gorgonocephalus sp. (Figur 16) er en stor og karakteristisk slangestjerne som kjennes av sine sterkt forgrenede armer, og den lever vanligvis på hardbunn i kalde, dype farvann. Arten ble funnet på fire videolinjer (40-42, 52) vest av Reinøya (Figur 7), på dybder rundt 40 – 70 meter. Ren hardbunn (fjell/blokk) er mer sjelden i Indre Porsangerfjord, men fantes flekkevis på alle undersøkte dybder. Kongekrabben ble hyppig observert over hele kartleggingsområde, mest på bløtbunn og blandete sedimenter (se avsnitt 5) men på alle dybder.
Det ble ikke identifisert noen bentiske rødlistete arter. Observerte tarearter bygger rødlistete naturtyper (se avsnitt 4.8); tareartene i seg selv er ikke rødlistet i Norge, men er vurdert som LC (Livskraftig). Dyr i slektene til Gorgonocephalus, Gersemia og flere svamp (for eksempel Phakellia og Suberites) er vurdert som LC (Livskraftig).
Figur 16. Ulike bunndyr på stein og haneskjell sett på video i Indre Porsangerfjord. Det vises bl.a. anemoner, et medusahode (Gorgonocephalus sp.) og en ukjent svamp.
4.5 - Marine naturtyper
En naturtype er definert som «en ensartet type natur som omfatter alt plante- og dyreliv og de miljøfaktorene som virker der» (Miljødirektoratet). En naturtype har karakteristiske økologiske egenskaper som skiller det fra andre naturtyper og kartlegging gjøres fordi slike områder ofte inneholder truede eller sårbare arter, artsrike naturmiljøer eller andre særpregede økologiske forhold som bør ivaretas i arealforvaltningen. Det Nasjonale programmet for kartlegging av marint biologisk mangfold har tidligere kartlagt marine naturtypene på kysten i henhold til håndbok 19 (Bekkby m.fl., 2011; Direktoratet for naturforvaltning, 2007). Større forekomster av naturtypene er gjort tilgjengelig via Miljødirektoratet sine kartløsninger (http://kart.naturbase.no/).
Indre Porsangerfjord har en rekke marine naturtyper, deriblant ålegras, bløtbunnsområder i strandsonen, større forekomst av haneskjell og gyteområder for fisk. Noen av naturtypene som finnes i Indre Porsangerfjord er blant rødlistete naturtyper (Tabell 4, Figur 17). Den Norske rødlisten for naturtyper ble nylig oppdatert og bygger på NiN 3.0 som innebærer en endring i terminologi og en økning i antall marine vurderingsenheter (Artsdatabanken, 2025).
Figur 17. Oversikt over kategorier benyttet for å beskrive rødlistestatus for arter og naturtyper. Kilde: Artsdatabanken. Lisens: CC BY 4.0
Dette kapittel gir en oversikt over de marine forvaltningsrelevante naturtyper som er kjent forekommende i Indre Porsangerfjord, deres kunnskapsstatus i utredningsområdet samt deres økologi og betydning. Tabell 4 gir en oversikt over naturtyper som kan være tilstede i Indre Porsangerfjord og hvorvidt disse er kartlagt tidligere eller inkludert i kartleggingen i 2025.
Naturtype
Kode DN-håndbok 19
Forvaltningsrelevant marin naturenhet (NE) etter Bekkby mfl. 2021
Norsk rødliste for naturtyper (2025)
Kunnskapsstatus i Indre Porsangerfjord
Inkludert i denne kartleggingen
Tangsamfunn
NE-3 Tangsamfunn
Ikke systematisk kartlagt
Ja
Blåskjellbunn
NE-2 Blåskjellbunn
Ikke systematisk kartlagt
Ja
O-skjellbunn
NE-8 O-skjellbunn
Ikke systematisk kartlagt
Ja
Stortareskog
I01 Større tareskogforekomster, Stortareskog kun bestående av stortare (I0101), Stortareskog med innblanding av andre tarearter (I0102)
NE-16 Nordlig storstareskog
NT (Stortareskog Moderat eksponert stortareskog i Norskehavet og Barentshavet sør)
Kartlagt via EPIGRAPH prosjektet og registrert i Naturbase, men ingen større forekomst i Indre Porsangerfjord.
Ja
Sukkertareskog
I01 Større tareskogforekomster, Sukkertare (I0103)
NE-14 Nordlig sukkertareskog
EN (Moderat eksponert sukkertareskog i Norskehavet og Barentshavet sør)
Kartlagt via EPIGRAPH prosjektet. Sukkertare er ikke registrert i Naturbase.
Ja
Fingertarebunn
I01 Større tareskogforekomster
NE-18 Nordlig fingertarebunn
VU (Moderat eksponert fingertareskog i Norskehavet og Barentshavet sør)
Kartlagt via EPIGRAPH prosjektet. Fingertare er ikke registrert i Naturbase.
Ja
Butarebunn
I01 Større tareskogforekomster
NE-20 Sørlig butarebunn
Kartlagt via EPIGRAPH prosjektet. Butare er ikke registrert i Naturbase.
Ja
Ruglbunn
I10 Løstliggende kalkalger (med subtyper etter art)
NE-21 Ruglbunn
NT
Ikke systematisk kartlagt.
Ja
Ålegrasbunn
I11 Ålegrasenger og andre undervannsenger (I1101 Vanlig ålegras)
NE-10 Ålegrasbunn
Kartlagt, og registrert i Naturbase.
Delvis
Haneskjellbunn
I14 Større kamskjell-forekomster (I1402 Haneskjell)
Kartlagt, større forekomst registrert i Naturbase.
Ja
Svampsamfunn
NE-25 Svampsamfunn
NT (Dyp svampskog på sediment bunn i atlantisk vann)
NT (Eksponert dyp hornkorallskog på fastbunn i kystvann), NT (Kysttilknyttet korallrev-bunn), NT (Noe beskyttet dyp hornkorallskog på fastbunn i atlantisk vann),
Ikke systematisk kartlagt.
Ja
Bløtbunnsområder i strandsonen
I08 Bløtbunnsområder i strandsonen med utforming (I0803).
NE-5 Tidevannsmudderflate
Kartlagt, større forekomst registrert i Naturbase.
Nei
Skjellsandforekomster
Skjellsandforekomster I12
Ikke systematisk kartlagt.
Nei
Israndavsetninger
I07 Israndavsetninger (med subtyper)
Kartlagt i Indre Porsangerfjord, tilgjengelig via NGU sine kart.
Nei
Litoralbassenger
I06
Ikke systematisk kartlagt.
Nei
Tabell 4 Oversikt over klassifisering av marine naturtyper inkludert i kartleggingen etter forskjellige rammeverk. Relevante tilsvarene naturtyper i Norsk rødliste for marine naturtyper (2025) med kategoriene NT (Nær truet), VU (Sårbar), EN (Strekt truet), CR (Kritisk truet) er også visst.
4.6 - Bløtbunnsområder i strandsonen
Bløtbunnsområder i strandsonen har blitt kartlagt i Nasjonalt program for kartlegging av marint biologisk mangfold og inneholder også den forvaltningsrelevante naturtypen «Tidevannsmudderflate» (Bekkby m.fl., 2021). Bløtbunnsområder i strandsonen finnes spesielt på vestsiden av Indre Porsangerfjord, rundt Stabbursnes og i Vesterbotn. Men også Børselv har en større forekomst ved elvemunningen. Disse områdene har ofte høyt biologisk mangfold og biomasse av små nedgravde arter som børstemark, muslinger og skjell som danner næringsgrunnlag for et rikt fugleliv. Fjæremarken Arenicola marina er en av de største og tallrikeste børstemarksarter som også forekommer hyppig i Indre Porsangerfjord. Bløtbunnsområdene samsvarer ofte med forekomst av ålegress og fravær av store fastsittende alger, men i indre deler av Porsangerfjord er det registrert forekomster av tarearter med særegen vokseform på tidevannsmudderflater (Sivertsen & Bjørge 2015). Ellers så er algefloraen på slike tidevannsmudderflater vanligvis begrenset til små mikroalger (som kiselalger) og enkelte forekomster av rød- og grønnalger (Bekkby m.fl., 2025).
Bløtbunnsområdene domineres av artsrike samfunn av børstemark, muslinger og krepsdyr, som utgjør et viktig næringsgrunnlag for fisk og sjøfugl. Fjell- og steinbunnsområdene langs sidene av fjorden gir leveområder for tang- og taresamfunn samt filtrerende organismer. Tilstedeværelsen av både arktiske og mer boreale arter gjør fjorden til en overgangssone hvor artsmangfoldet påvirkes av temperatur og dybdevariasjon. Store, sammenhengende strandenger er også habitat til salttolerante planter med en del arter som er karakteristisk for arktiske strøk, deriblant den rødlistete Kvitsjøsalturt (Salicornia dolichostachya pojarkovae) (Sommersel & Skulgam, 2014) som ellers har veldig få funn i Norge.
4.7 - Ålegrasbunn
Ålegrasbunn inngår i naturtypen «undervannsenger». Langs norskekysten er vanlig ålegras (Zostera marina, Figur 18 ) den klart mest utbredte og arealdannende arten. Dvergålegras (Z. noltei) forekommer sjeldent i Norge og er klassifisert som en egen naturtype (Bekkby m.fl., 2025). Til forskjell fra tang og tare er ålegras en ekte karplante, og rotsystemet gjør at engene stabiliseres samtidig som rotsystemet kan ta opp næring direkte fra sedimentet. I Norge forekommer ålegras på bløtbunn og er vanligst i grunne, skjermede viker. Dybdeutbredelsen varierer med lysforhold og region: i Skagerrak ned til 3 eller 8m, på Vestlandet er dypeste forekomst nesten 12m, mens arten i Troms og Finnmark vanligvis begrenses til de øverste 2–3 meterne.
Figur 18. Ålegras (Zostera marina). Foto: Jonas Thormar / Havforskningsinstituttet.
Ålegrasbunn er blant de mest økologisk betydningsfulle naturtypene langs norskekysten. Engene skaper tredimensjonale strukturer som gir skjul, oppvekstområder og beiteressurser for en lang rekke bunndyr, krepsdyr, fisk og andre marine arter. De fungerer også som viktige næringsområder for sjøfugl, blant annet svaner og ender. Ålegrasenger har høy primærproduksjon, stabiliserer sedimenter og bidrar til å binde karbon i havbunnen – såkalt blått karbon (Gagnon m.fl., 2024). Naturtypen påvirkes av en rekke stressfaktorer. Klimaendringer, overgjødsling og økt turbiditet kan redusere lysnivået og dermed engens utbredelsesdyp (Moore & Short, 2006; Olesen, 1996) og oppblomstring av fintrådete alger («lurv») kan svekke forholdene ytterligere. Fysiske inngrep som mudring, ankring, utfylling og bygging av strandsonetiltak kan skade røtter og skudd direkte eller føre til ustabilt sediment. I Norsk rødliste for naturtyper (Artsdatabanken, 2025) er saltvanns‑undervannsenger – inkludert ålegrasbunn – vurdert som LC (livskraftig). «Zostera beds» er derimot på OSPARs liste over truede og/eller minkende habitater.
Figur 19. Bløtbunnsområder i strandsonen og forekomst av ålegras (Zostera marina) in indre Porsangerfjord. Større forekomst ble kartlagt i Nasjonalt program for kartlegging av marint biologisk mangfold (Direktoratet for naturforvaltning, 2007) og vises som polygoner (lilla). Mindre forekomster er visst med kryss for økt synlighet. En lokalitet (grønn sirkel) med ålegress ble funnet i dette prosjekt under kartleggingen i 2025.
Den nordligste kjente forekomsten av ålegras i Norge er i fjordområder i Finnmark, selv om arten er langt vanligere lenger sør. I Indre Porsangerfjord finner vi en av de nordligste forekomstene vi kjenner til. Forekomstene av ålegras i Porsangerfjord ble kartlagt gjennom Nasjonalt program for kartlegging av marint biologisk mangfold - Kyst, og lokalitetene ligger registrert i Naturbase. Innen kartleggingen i Nasjonalt program var ålegress kun kjent fra enkelte lokaliteter på vestsiden av Porsangerfjord. I Porsangerfjorden og Laksefjorden vokser ålegras hovedsakelig i fjæresonen og kartlegging foretas derfor mest effektivt fra land med bruk av vadebukse ved lav vannstand, mens det i resten av landet vokser i sjøsonen og vanligvis kartlegges med nedsenkbart kamera. Båtmetoden kan brukes, men vil være saktere og kreve risikabel navigasjon i tidevannssonen ved flo. Store forekomster av ålegras i indre Porsangerfjord er mest utbredt på bløtbunnsområder i fjæresonen (Figur 19). Men det ble også registrert mange små flekker, ofte i fjære-basseng med relativ grovt substrat (Figur 20, Figur 21).
Naturtypen ble ikke inkludert i kartleggingen i dette prosjekt fordi det var vanskelig å komme til grunne områder med småbåt. Ålegras ble likevel funnet på en videolinje i indre Vesterbotn (Figur 19) og sammen med tidligere kartlegging er det tilstrekkelig informasjon om utbredelsen av naturtypen i Indre Porsangerfjord.
Figur 20. Ålegras i tidevannsbasseng.
Figur 21. Korte ålegrasskudd i tidevannsbasseng.
4.8 - Tareskog
Tareskog er et høyproduktivt og artsrikt økosystem som er utbredt i grunne områder langs store deler av norskekysten. Mens ulike tangarter ofte dominerer algevegetasjonen i fjæresonen, så overtar tareartene dominansen i sjøsonen nedenfor lavvannsgrensen, der de kan vokse ned til ca. 30 meters dyp. Tareskogene er blant annet viktige oppvekstområder for flere fiskeslag (Norderhaug m.fl., 2005) og næringsområder for sjøfugl (Christensen-Dalsgaard m.fl., 2020), i tillegg å være et viktig karbonlager og dermed bidra positivt i klimaregnskapet (Norderhaug m.fl., 2023). Tareskogene defineres som ulike naturtyper basert på hvilke tarearter som dominerer vegetasjonen i et gitt område, noe som igjen henger sammen med grad av bølgepåvirkning. Stortare (Laminaria hyperborea) dominerer ofte tarevegetasjonen i åpne bølgeeksponerte kystområder, mens sukkertare (Saccharina latissima) har sin største utbredelse i mer bølgebeskyttede områder. I grunne områder kan også arter som fingertare (Laminaria digitata, Figur 22 ) og butare (Alaria esculenta) dominere. Stedvis kan artene også opptre sammen i mer blandede taresamfunn. De nevnte tareartene er utbredt i alle regioner av norskekysten, med unntak av butare, som ikke vokser inn i Skagerrak og stortare som ikke finnes på Svalbard. Tareartene er flerårige og vokser primært på fjell eller steinbunn, men enkelte arter som bl.a. sukkertare og fingertare kan også vokse festet til grus og opptre i områder med sand og mudderbunn (Sivertsen & Bjørge 2015).
Store tareskogsområder langs kysten av Nord-Norge har siden 1970-tallet vært preget av nedbeiting fra kråkeboller (Norderhaug & Christie 2009). Nedbeitingen av tareskogene i nordområdene er senere satt i sammenheng med overfiske av kråkebollespisende fisk som steinbit, hyse og torsk (Norderhaug mfl. 2021). Siden 1990-tallet har det vært det vært en gradvis tilbakegang av kråkeboller og reetablering av tareskogene i Trøndelag og sørlige deler av Nordland, mens store arealer lengre nord fortsatt er nedbeitet (Christie mfl. 2019). Alle naturtypene som innbefatter tare, er i Norsk rødliste for naturtyper kategorisert som truet eller nær truet i denne regionen på grunn av redusert arealutbredelse i siste 50-årsperiode (Artsdatabanken, 2025). Da kråkebollene generelt har større evne til å beite ned tarevegetasjonen i bølgebeskyttede områder er sukkertareskog regnet som sterkt truet (EN) og stortareskog regnet som nær truet (NT). Truetheten for fingertareskog er vurdert å ligge mellom disse og kategorisert som sårbar (VU), mens butarebunn ikke er vurdert i rødlisten for naturtyper i 2025. På landsbasis er ingen av tareartene regnet som truet eller nær truet (Artsdatabanken, 2025).
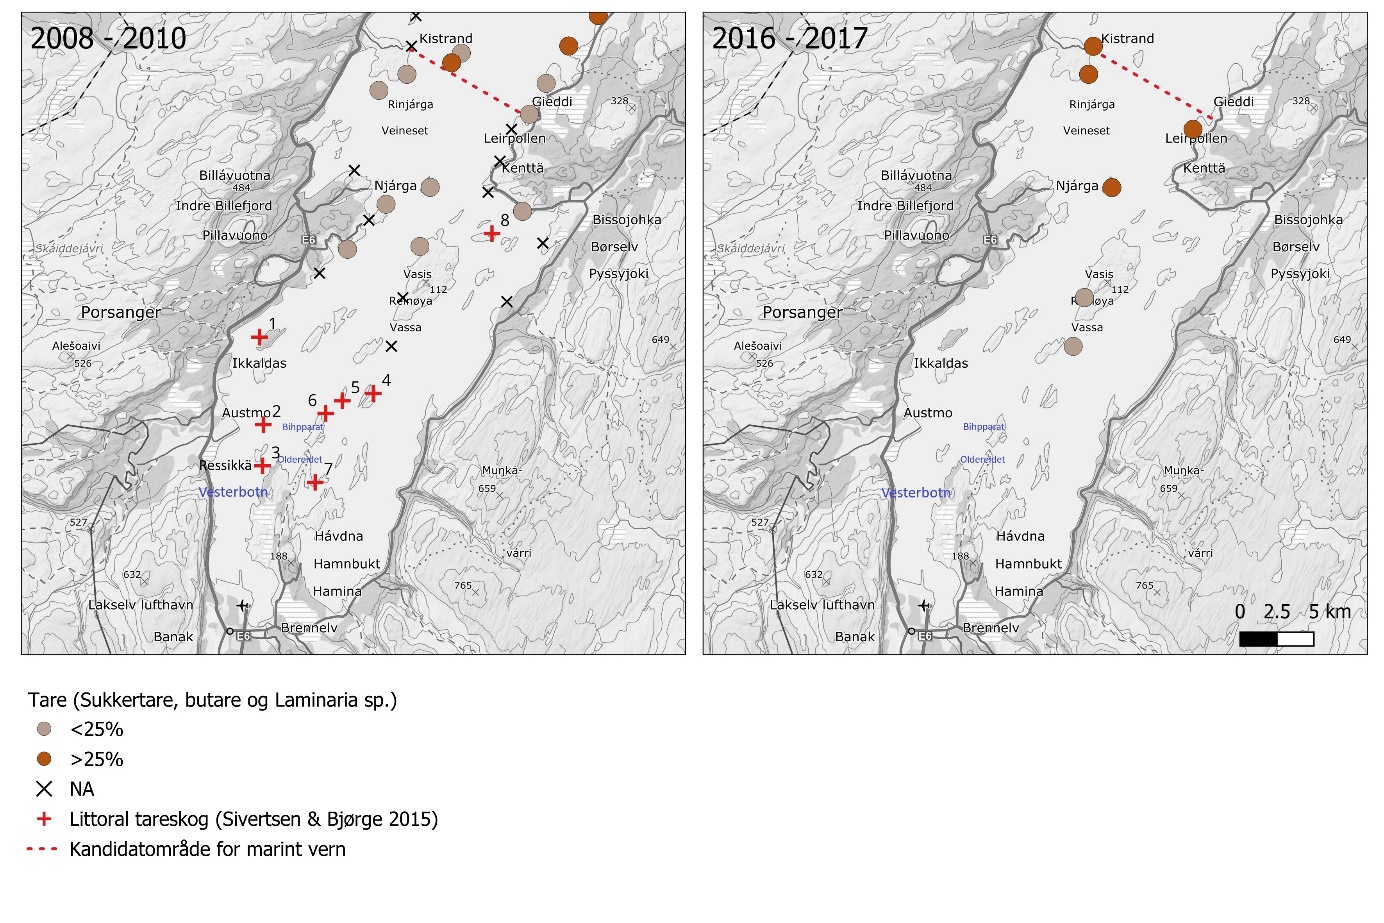
Det ble gjennomført kartlegging av tareforekomster i Porsangerfjorden i forbindelse med Havforskningsinstituttet sitt EPIGRAPH -prosjekt i perioden 2008-10 (Figur 23). I dette arbeidet ble de grunneste områdene undersøkt med visuelle registreringer og innsamlinger, mens dypere deler ble undersøkt langs stikkprøvebaserte videolinjer fra ca. 2 – 25 meters dyp i en 90 graders vinkel ut ifra kystlinjen. Resultatene fra disse undersøkelsene viste store geografiske variasjoner i forekomster av tare mellom ulike områder i fjorden. I videoundersøkelsene fra sjøsonen ble stortare og fingertare registrert som en gruppe (Laminaria sp.) da disse artene er vanskelig å skille fra hverandre i videoene. Her ble det generelt registrert avtagende forekomster av tare fra ytre til indre deler av fjorden (Pedersen m.fl., 2018). Undersøkelsene på grunt vann dokumenterte imidlertid betydelige forekomster av både fingertare og sukkertare i enkelte deler av det indre fjordområdet (Pedersen m.fl., 2018; Sivertsen & Bjørge, 2015). Sammenhengende, større områder med tare ble funnet på lokalitetene Resikka, Austmo (Muolko øya), Stabbursleia, og Oldereidet til Bihpparat (Pepperskjæret) i og utenfor munningen av Vesterbotn (pers. komm. Knut Sivertsen, 2025) (se Figur 23). Sukkertare dominerte på disse lokalitetene, med innslag av butare ved Stabbursleia og Resikka. Åtte områder med store forekomster (0,01-3 km2) av litoral tareskog ble også kartlagt (Figur 23), og besto hovedsakelig av fingertare og sukkertare (Sivertsen & Bjørge, 2015). Tareartene hadde her en spesiell vekstform med korte og fleksible stilker som kan anses som en tilpassing til tørrlegging ved lavvann. Tareforekomstene i sjøsonen i hele Porsangerfjorden var den gangen sterkt preget av å være nedbeitet av drøbakkråkeboller (Strongylocentrotus droebachiensis) (pers. komm. Knut Sivertsen, 2025). Et utvalg av videolinjer ble undersøkt på ny i 2016-17, og det ble da registrert reduserte kråkebolleforekomster og økte tareforekomster langs de gjenbesøkte videolinjene (se Figur 23). I 2013 ble det gjennomført kalkingsforsøk for å fjerne kråkeboller i avgrensede områder mellom Veineset og Holmfjord nær yttergrensen av det foreslåtte verneområdet i Indre Porsanger. I etterkant (2013-21) har man observert en økning i tareforekomstene og tareassosierte organismer som bl.a. bløtdyr og krepsdyr i disse områdene (Christie m.fl., 2024). Kongekrabbenes beiting av kråkeboller har sannsynligvis bidratt sterkt til reduksjonene i kråkebollebestandene med påfølgende gjenvekst av tareskog i Porsangerfjorden (Pedersen m.fl., 2018, Christie m.fl., 2024). Samlet primærproduksjon fra tare i området vest for Reinøya av Indre Porsangerfjord er estimert et titalls ganger høyere enn i resten av fjorden (til rundt 41 t C km-2 y-1) (Pedersen m.fl., 2018). Tareforekomst i Indre Porsangerfjord er ikke bare viktig som et oppveksthabitat for marine dyr og fisk, den bidrar også som matkilde. Detritus (organisk material) fra døde eller fragmenterte deler av makroalger (tang og tare) som løsner og brytes ned i vannmassene eller på bunnen gir mat til bunndyr.
I Nasjonalt program for kartlegging av marint biologisk mangfold (Direktoratet for naturforvaltning, 2007) ble det i 2016-17 samlet inn data for utvikling av arealdekkende utbredelsesmodeller for stortare i Finnmark. Disse utbredelseskartene er tilgjengelige gjennom Miljødirektoratets Naturbase (https://www.miljodirektoratet.no/tjenester/naturbase/) og predikerer at stortareforekomstene er begrenset til det ytre fjordområdene. Tilsvarende arealdekkende utbredelseskart er ikke utviklet for sukkertare, fingertare og butare som er de tareartene som er vanligst forekommende i de indre delene av Porsangerfjorden. Det finnes også noe informasjon om enkeltfunn av tarearter i artsbanken (https://artskart.artsdatabanken.no), men disse kartene er mangelfulle og tareobservasjonene gjort i EPIGRAPH -prosjektet ligger ikke inne her. Det er i de senere år også gjennomført flere eksperimentelle studier i Porsangerfjorden for å blant annet undersøke temperaturresponser hos ulike tarearter og kråkeboller (Diehl m.fl., 2024; Koch m.fl., 2025; Trautmann m.fl., 2024). I forbindelse med disse undersøkelsene ble det blant annet benyttet stortare samlet inn i Holmfjord (70.2° N, 25.3° Ø) i 2022 (Diehl m.fl., 2024), så arten er registrert lenger inn i Porsangerfjorden enn det utbredelseskartene i naturbase predikerer.
Figur 23. Observasjoner av tare fra videolinjer gjennomført under EPIGRAPH prosjektet (Havforskningsinstituttet) i 2008-2010 og 2016-2017. Datapunktene viser maksimal dekningsgrad observert på videolinjene. Det vises også 8 lokaliteter med spesielle littorale tareforekomster kartlagt i 2010 (Siversten & Bjørge 2015).
4.8.1 - Sammendrag fra kartleggingen 2025
Tareskog i Indre Porsangerfjord består i hovedsak av sukkertare (Figur 24). Det ble funnet sukkertare på 35 av 65 videolinjer, og 25 linjer hadde en dekningsgrad på > 25% (Figur 26). Butare forekom ofte blandet med sukkertare og hadde tettheter >25% på 6 videolinjer som derfor kan kalles «tareskog» (Figur 25 og Figur 26). Fingertare ble funnet på 3 linjer der strømmen var litt sterkere, men bare området rundt øya Ressikkä skillte seg ut med tett, blandet tareskog av sukker-, og fingertare på dybder på rund 1.5 m (Figur 27). Her ble tidligere såkalte litoral tareskog med hovedsakelig fingertare observert (Sivertsen og Bjørge 2015), som også visste en spesiell vekstform med korte stilker. Området med tareskog måler rundt 1.5 km2. Det er ikke funnet stortare i utredningsområdet, siden denne arten foretrekker mer eksponert bunn.
Fire av stasjonene fra EPIGRAPH prosjektet ble gjenbesøkt sommeren 2025 (videolinjer 7, 10, 12, 29 og 44, se Figur 26). Det ble registrert tare på alle disse videolinjer med samme eller høyere dekningsgrad som i tidligere undersøkelser, bortsett fra videolinje 44, der vi registrerte bare få enkle sukkertare. Under EPIGRAPH-prosjektet i perioden 2008-10 ble det registrert en god del kråkeboller (Strongylocentrotus droebachiensis) i transektene, noe som ikke ble observert i 2017-18 perioden. Det ble ikke observert større forekomst av kråkeboller på videoopptak fra Indre Porsangerfjord i 2025. Mindre individer er imidlertid vanskelige å påvise med video. Under prøvetaking med kasterive ble juvenile kråkeboller funnet under stein og i rugl, noe som indikerer at rekruttering til kråkebollebestanden forekommer i området. Dette støttes av lokale observasjoner på grunt vann. Området rundt Stabbursnes er derimot påvirket av ferskvann fra Stabburselva og saliniteten i dette område varierer gjennom året, med gjennomsnittlig lave verdier (< 20 psu). Drøbakkråkebollen foretrekker høyere saliniteter (30-35 psu) og larvene er enda mer sensitive (Scheibling m.fl., 2020). Kråkebollene kan derfor ikke etablere kraftige populasjoner og er ofte sjelden eller fraværende fra indre fjorder med elevutløp. Område i rundt Ressikä (Figur 27) er derfor antakelig beskyttet mot betydelig beiting.
Figur 24. Blandet sukkertare og butareskog på få meters dybde i Indre Porsangerfjord.
Figur 25. Tareskog dominert av butare på videolinje 28 og en torsk som skjuler seg i tareskogen.
Figur 26. Forekomst av tare og dekningsgrad på videolinjer under kartlegging i 2025.
Figur 27. Detaljert registreringer av fingertare og sukkertare på videolinje 56 ved Ressikkä i indre vest Porsangerfjord under kartleggingen i 2025. Stipulert linje viser estimert område med grunn tareskog (basert på satellittbilde) på omtrent 1.5 km2.
4.9 - Tangsamfunn
Tang er flerårige brunalger som vokser på hardbunn i tidevannssonen over tarevegetasjonen langs hele Norskekysten. Tangsamfunnene er viktige habitater og næringsområder for mange strandtilknyttede arter. Tette bestander av tang skaper tredimensjonale strukturer som gir skjul for en rekke dyr – fra små evertebrater som blåskjell til fisk. Slike vegetasjonsrike områder gir beskyttelse både mot predatorer og fysisk påvirkning, og fungerer som oppvekstområder. Tang produserer store mengder biomasse i fjæresone og gruntvannsområder og bidrar vesentlig til kystens karbonkretsløp og næringsnett (Pessarrodona m.fl., 2022). Tangartene vokser ofte i avgrensede horisontale belter (soneringer) på grunn av deres ulike evne til å tåle tørrlegging. Arter som sauetang (Pelvetia canaliculata), spiraltang (Fucus spiralis), blæretang (Fucus vesiculosus), grisetang (Ascophyllum nodosum) og sagtang (Fucus serratus) danner vanligvis soneringene i denne rekkefølgen fra øvre del av fjæresonen til noe under lavvannsmerket. I tillegg til de nevnte tangartene er også skolmetang (Halidrys siliquosa) og gjelvtang (Fucus evanescens) observert i Porsangerfjorden (https://artskart.artsdatabanken.no). Stor tidevannsamplitude kan føre til at tidevannssonen og dermed tangbeltet får større horisontal utstrekning enn lenger sør i Norge.
Figur 28. Tangsamfunn i Indre Porsangerfjord. Foto: Mona M. Fuhrmann / Havforskningsinstituttet.
Ingen av tangsamfunnene ble vurdert i norsk rødliste for naturtyper i 2025, men samtlige tangarter er tidligere vurdert som livskraftige (LC) i Norge. Av miljøfaktorer som påvirker tangsamfunnene så er det særlig isskuring som vil kunne redusere forekomstene i fjæresonen, spesielt i de indre fjordområder som vil være mest utsatt for isdannelse. Sammenlignet med tareartene i sjøsonen vil imidlertid tangartene i fjæresonen være mindre utsatt for beiting fra kråkeboller da disse i liten grad tåler tørrlegging.
Tangsamfunn var ikke en av de utvalgte naturtyper som ble kartlagt i forbindelse med Nasjonalt program for kartlegging av marint biologisk mangfold og arealdekkende utbredelseskart for tangsamfunn er ikke tilgjengelige i Miljødirektoratets Naturbase. Forekomst av tangarter og andre makroalger i tidevannssonen ble kartlagt i indre deler av Porsangerfjorden ifm. med EPIGRAPH prosjektet (Sivertsen & Bjørge 2015). Totalt 32 arter av makroalger ble den gang identifisert og forekomster av tangarter som grisetang, blæretang, sagtang og gjelvtang ble observert i det indre fjordområdet.
4.9.1 - Sammendrag fra kartleggingen 2025
I undersøkelsene gjennomført i 2025 er observasjonene av tangartene i fjæresonen underrepresentert, siden det var vanskelig å komme til grunne områder med småbåt og det ble ikke tid til å gjennomføre kartlegging fra land. I større målestokk er det anbefalt at forekomster avgrenses med bruk av fjernmåling, drone-/fly-, eller satellittbilder (Bekkby m.fl., 2025). Tangsamfunn er utbredt i fjæresonen i hele kartleggingsområdet ( Figur 28 ), både på hard og blandet bunn. Forekomstene visste ofte typisk sonering for beskyttete områder, med grisetang og spiraltang i øvre fjæresone og blære- og sagtang i nedre fjæresone ( Figur 29 ). Få videolinjer dekket dybdene som er mest relevante for tang (< 2 m), men det ble registrert sublittorale forekomst av tangsamfunn på 10 videolinjer med tettheter >25% på 3 av disse ( Figur 30 ).
Figur 29. Blandet tangsamfunn med grisetang og blæretang på bløtbunn med grus og stein.
Figur 30. Registreringer av sublittoral tang under kartlegging av Indre Porsangerfjord i 2025.
4.10 - Ruglbunn
Ruglbunn, også kjent som kalkalgebunn og mergelbunn, er bentiske karbonatøkosystemer som dannes ved akkumulering av frittlevende kalkalger (Figur 31). De kan dekke opptil 100 % av havbunnen og strekker seg over et område på minst 100 m² (Hall-Spencer m.fl., 2008; Rinde m.fl., 2022). Den frittlevende formen skiller rugl fra fastsittende kalkalger, som vanligvis vokser som rosa, skorpeformede strukturer på harde substrater som blokk og stein. Ruglbunn utvikler seg vanligvis på relativt flate og myke bunner der det er nok lys til at disse algene kan vokse (Wilson m.fl., 2004). Kalkalger som finnes i Nord-Norge er imidlertid tilpasset ekstreme variasjoner gjennom året, med midnattssol om sommeren og mørketid om vinteren, samt store variasjoner i temperatur, næringstilgang, saltholdighet og turbiditet i vannet (Teichert m.fl., 2012). Ruglbunnenes utbredelse påvirkes også sterkt av vannbevegelse. Strøm sørger for at algene roterer jevnlig, slik at alle sider får lys, at de blir mindre dekket av andre arter, og at de ikke begraves i sedimentene, noe som kan føre til oksygenmangel (Dutertre m.fl., 2015; Lavenère-Wanderley m.fl., 2021).
Figur 31. Vorterugl (Lithothamnion glaciale) byr et unikt levested til mange små organismer som anemoner, snegler og pigghuder. Foto: Erling Svensen / Havforskningsinstituttet.
I Norge forekommer ruglbunn langs hele kysten, og naturtypen er også registrert flere steder på Svalbard. Ruglbunn kan dannes av flere arter kalkalger. De viktigste artene er Boreolithothamnion glaciale, B. soriferum, B. tophiforme og Phymatolithon calcareum. De fleste av disse artene kan forekomme både som fastsittende former og som frittlevende rugl. På grunn av sin komplekse tredimensjonale struktur huser ruglbunn et svært rikt mangfold av evertebrater og alger (Jardim m.fl., 2022; Teichert, 2014) og biodiversiteten er ofte høyere enn i andre kystnære bentiske habitater som mudderbunnflater, ålegrasenger og tareskog (Helias & Burel, 2023; Peña m.fl., 2014; Schoenrock m.fl., 2018). Kunnskapen om fauna- og florasamfunn tilknyttet norske ruglbunner er fortsatt begrenset. En nylig studie fra Lofoten dokumenterte imidlertid nær 170 makrofaunataksa fordelt på to referanselokaliteter (Legrand m.fl., 2024). Ruglbunn fungerer også som viktige frøbanker for mikroskopiske livsstadier av makroalger og fungerer dermed som refugier som bidrar til økt økosystem-resiliens etter miljøforstyrrelser (Fredericq m.fl., 2019; Krayesky-Self m.fl., 2017; Sauvage m.fl., 2016). Rugl habitater byr også på viktige leve- og oppvekstområder for flere kommersielt viktige marine arter, blant annet torsk, hyse, hvitting (Elliott mfl. 2017; Kamenos mfl. 2004; Valliant mfl. 2025) og haneskjell .
Kalkalger som danner ruglbunn vokser svært sakte, vanligvis med 0,5-1,5 mm per år (Blake & Maggs, 2003; Freiwald, 1998), noe som gjør dem spesielt sårbare for forstyrrelser, og deres langsomme gjenopprettingstid gjør at de anses som ikke-fornybare ressurser (Gagnon m.fl., 2012). Ruglbunn regnes også blant de mest sårbare marine økosystemene globalt i møte med klimaendringer. Kalkalger er særlig følsomme for havforsuring på grunn av løseligheten til deres karbonatskjelett. Prediksjoner fra modeller antar et betydelig tap av ruglbunn i Arktis innen 2100 som følge av antropogene CO₂-utslipp (Brodie m.fl., 2014). Langs norskekysten regnes utslipp fra oppdrettsanlegg som en av hovedtruslene. Norske feltstudier viser tydelig svekket tilstand og økt dødelighet hos korallalger nær oppdrettsanlegg, samt gradvis økning i levende dekning med avstand fra merdene (Legrand m.fl., 2024). Det er også dokumentert redusert mangfold i tilknyttet makrofauna. Økt tilførsel av næringsstoffer fra oppdrett og landbruk kan endre makroalgesamfunn ved å favorisere rasktvoksende epifytter som konkurrerer med kalkalgene. Ruglbunn trues også av introduksjon og spredning av fremmede arter. Selv om ingen studier hittil har dokumentert direkte effekter av fremmede arter på ruglbunn i Norge, gir observasjoner av havnespy (Didemnum vexillum) i umiddelbar nærhet av ruglbunn ved Haugesund grunn til bekymring.
I Norge er ruglbunn (NIN MA05-13) oppført på Rødlista for naturtyper (Artsdatabanken 2025). Til tross for dette, finnes det per i dag ingen nasjonal vernestatus eller eget forvaltningsprogram for denne naturtypen. OSPAR-kommisjonen har understreket behovet for å beskytte denne naturtypen (OSPAR 2010), og EUs habitatdirektiv lister frittlevende kalkalger som en naturtype med særskilt økologisk verdi (https://eunis.eea.europa.eu/habitats/8477). I 2007 ble ruglbunn identifisert som en marin naturtype med behov for forbedret kartlegging i Norge (Direktoratet for naturforvaltning, 2007). Ved avslutningen av det Nasjonale program for kartlegging av marint biologisk mangfold i 2019 var denne naturtypen fortsatt ikke fullstendig kartlagt og den har ikke blitt kartlagt systematisk i Porsangerfjorden.
Fra tidligere prøvetaking er det påvist ekte ruglbunn på fem lokaliteter i Porsangerfjorden (Figur 32, røde stjerner) (pers. komm. Eli Rinde). Prøver fra den nordligste lokaliteten rundt Hamnaholmen ble tatt av Hartvig Christie (NIVA) og Stein Fredriksen (UiO) i 2016 gjennom det NIVA ledede prosjektet CoralAlg, finansiert av Artsdatabanken. Prøver fra de andre lokalitetene ble tatt i 2018 av Multiconsult, og analysert av NIVA. Det var kun et taksa som dannet ruglbunnene dvs. Lithothamnion cf. glaciale. Alle disse funnene er inkludert i Artskart.
4.10.1 - Sammendrag fra kartleggingen 2025
Det ble funnet rugl (løsliggende kalkalger) på 23 av 65 videolinjer på dybder fra rundt 5-30 meter ( Figur 32 , Figur 33 ). Noen av linjene hadde et høyt, men ikke unormalt, antall av døde kalkalger, spesielt på grunnere vann. Det er ikke kjent i hvor vidt andelen av død rugl har forandret seg over tiden før kartleggingen, men det anbefales å følge dette opp videre. Av videolinjene ble 15 videolinjer klassifisert som ruglbunn ( Figur 33 ), med tettheter > 25% (i samsvar med Bekkby m.fl. 2025). Ofte var ruglbunnen dekket med andre alger (for eksempel kjerringhår), så derfor kunne ikke dekningsgrad bestemmes nøyaktig. Ruglbunn i Indre Porsangerfjord kan anses som vanlig i de ytre områdene mellom skjærene øst og sør fra Reinøya, der strømmen er sterk nok og sedimentasjonen begrenset. Likevel er ikke naturtypen like tett og forekomstene like store som for eksempel kjent fra Lofoten. Den dominante arten som ble funnet under kartleggingen er mest sannsynlig Lithothamnion glaciale , men dette må bekreftes med genetiske analyser. Alder, størrelse og formvariasjon av ruglklumpene er relevant for naturmangfold fordi den skaper flere forskjellige mikrohabitater for små organismer (Rinde mfl. 2022). Større, mindre kompakte med forgreinete klumper kan være derfor av større verdi og dette burde undersøkes nærmere. Observasjonene fra Porsanger viser en del større klumper, med disse er ikke av samme størrelse som kjent fra Lofoten og Troms. Det vises likevel i prøvene som ble tatt under kartleggingen at blant annet små haneskjell og slangestjerne er vanlig i ruglklumpene. Brunpølsen Cucumaria frondosa, en filtrerende sjøpølse, er også vanlig i ruglbunn habitatene i Indre Porsangerfjord. Under kartleggingsarbeid ble det også observert mange kongekrabber (Paralithodes camtschaticus) som beitet direkte på makrofauna og haneskjell i ruglbunn (Figur 50). Den høye forekomsten av denne arten kan dermed utgjøre en betydelig lokal trussel, gjennom fysisk ødeleggelse og nedgraving av kalkalger i sedimentene, samt direkte og indirekte effekter på tilknyttet biodiversitet.
Figur 32. Ruglbunn i indre Porsanger på videolinjen 33. Denne forekomsten ble klassifisert med >50% tetthet. Det vises både andre alger som dekker rugl, og arter som ofte ble funnet i samme habitat, som for eksempel haneskjell, brunpølsen og slangestjernen Ophiopholis aculeata.
Figur 33. Forekomst av rugl og ruglbunn i Indre Porsangerfjord. Det vises observasjoner fra videolinjer i 2025 og tidligere prøvetatte lokasjoner fra Multiconsult i 2018.
Framtidig kartleggingsarbeid burde konsentrere seg på videre avgrensning av naturtypen i Porsangerfjorden. Avgrensning av ruglbunn kan være utfordrende. Indre Porsangerfjord viser fravær av typiske avsetninger i tidevannssonen som ellers kan stedfestes med hjelp av satellittbilder. Dybde, bratthet og strømforhold vil være en viktig faktor for å modellere utbredelsen, med dette krever høyoppløselige data. Ruglbunn kan forekomme fragmentert, og kan være fraværende selv der forholdene tilsynelatende er gunstige.
4.11 - Blåskjell og O-skjellbunn
Blåskjell (Mytilus edulis) finnes langs hele norskekysten, fra Skagerrak til Nord-Norge. De er svært tallrike i norske farvann, med klimaforandringer beveger utbredelsen av arten nordover mot Svalbard (Leopold m.fl., 2019) mens sørlige utbredelse er antatt til å minke (Torres m.fl., 2025). Blåskjell finnes vanligvis fra fjæresonen og ned til rundt 10 meters dyp. Skjellene fester seg med byssustråder på hardbunn. Blåskjellbunn som naturtype er spesielt beskrevet og vurdert i Skagerrak, men habitatet forekommer langs store deler av kysten der forholdene er egnet (hardt substrat og god vannutskifting). Her danner blåskjell banker eller kontinuerlige belter i fjæresonen (Bekkby m.fl., 2025). Men blåskjell finnes også ofte flekkvis på bløtbunn med små stein, her vanligvis i mindre tettheter enn det inngår i definisjonen som naturtype. Blåskjellbunn overlapper gjerne med andre naturtyper som tangsamfunn. Blåskjellbunn er et nøkkelhabitat i kystøkosystemer og har flere viktige funksjoner. Voksne blåskjell filtrerer store mengder vann for å spise planteplankton og mikroorganismer. Dette gir bedre vannkvalitet og bidrar til å stabilisere næringsforhold i kystsonen. Blåskjellkolonier danner komplekse habitater som gir skjul og leveområder for mange smådyr (snegler, børstemark, krepsdyr m.m.). Dette øker det lokale biologiske mangfoldet betydelig. Blåskjell er viktig føde for mange arter innen sjøfugl, fisk og evertebrater, for eksempel ærfugl, tjeld, måker, ørret, korstroll og krabber. På bakgrunn av økende bekymring for både forsvinning og endringer i bestandene har Havforskningsinstituttet etablert et overvåkingsprogram for blåskjell langs hele norskekysten (Strohmeier m.fl., 2024) men blåskjell har ikke blitt systematisk kartlagt i Porsangerfjorden. Forekomster av blåskjellbunner i fjæresonen kartlegges i felt ved hjelp av droner eller ved direkte observasjoner på lavvann (Bekkby m.fl., 2025) og ved hjelp av svømmetransekter på få meters dybde (Strohmeier m.fl., 2024). Kartlegging med slepekamera er derfor mindre egnet.
O‑skjell (Modiolus modiolus) er en stor musling i blåskjellfamilien. O‑skjell er utbredt langs hele norskekysten, inkludert fjorder, men lever noe dypere enn blåskjell da de ikke tåler tørrlegging ved lavvann. Muslingen liker seg i strømrike områder ned til ca. 70 m dyp (Bekkby m.fl., 2025) og den ligger ofte halvveis nedgravd. Naturtypen o-skjellbunn omfatter grunn sedimentbunn av sand, skjellsand, grus eller rugl, der o‑skjell forekommer tett nok til å utgjøre en organisk struktur, dvs. banker (artsdatabanken). Arten O‑skjell finnes langs hele Norskekysten, men tette forekomster er mer begrenset og fragment enn blåskjellforekomster. O‑skjellbanker er dokumentert blant annet i Nordsjøen, der svært høye tettheter er registrert (Mareano). Naturtypen fungerer som et leveområde for et stort mangfold av bunndyr (bl.a. svamp, pigghuder og børstemark) så de øker både artsrikdommen og biomassen sammenlignet med omkringliggende havbunn. På samme måte som blåskjell er o‑skjell filterfødere som bidrar til økt vannkvalitet, men de trenger som regel god vannutskifting for å trives. O-skjell er en langlivet art og kan bli over 25 år gammelt, som gjør at arten er særlig sårbar for menneskelig påvirkning. O-skjell er sensitiv mot forurensning og økt sedimentering. I framtiden kan de muligens påvirkes av økende havtemperaturer og introduksjon av invasive arter, som for eksempel havnespy, som kan overta muslingbankene (Järnegren m.fl., 2023). Vekst eller nedgang i en O-skjell populasjon kan være en langvarig prosess og det trengs tett overvåkning for å oppdages. Arten i seg selv er ikke beskyttet, men habitatet regnes som potensielt sårbart i henhold til OSPAR . I Norsk rødliste for naturtyper (Artsdatabanken, 2025) er grunn sedimentbunn med o‑skjell vurdert som livskraftig (LC) men med betydelig usikkerhet, siden utbredelsen er dårlig kartlagt. O-skjell har ikke blitt kartlagt i Porsangerfjorden, og siden arten ofte er nedgravd kan det være utfordrende å kartlegge den med et slepekamera der farten ikke kan senkes nok for å gjøre detaljerte observasjoner.
4.11.1 - Sammendrag fra kartleggingen 2025
På videolinjene 31, 55 og 56 ble det observert større tettheter av små blåskjell ( Figur 34 ) på grunn sandbunn eller grus og taren var dekket med små blåskjell fra årets rekruttering rundt Ressikkä øya ( Figur 35 ). Larvene til blåskjell slår seg ned på bunn rundt Juli/August og dette skjer litt seinere i nord enn sør Norge (Frantzen, 2007). Fjordene fungerer som retensjonsområder for larver, og studien fra Frantzen (2007) har visst at både påslag på bunn og rekruttering er høyest i den innerste delen av Porsangerfjorden sammenlignet med ytre fjorden og Altafjorden. En stor del av de små rekruttene vil antakelig forsvinne gjennom vinteren når området dekkes med is og en del vil muligens bli spist av predatorer. Det ble observert noen sjøstjerner i området, spesielt på videolinje 31. Sjøstjerner som korstroll ( Asterias rubens ) trives ikke i områder påvirket av mye ferskvann. Kongekrabben er trolig en av hovedpredatorene til blåskjell i Porsangerfjord. I Djupvika ble det observert blåskjellbunn med større skjell på en fjellvegg sammen med tang, og dette er det eneste av de undersøkte områdene som kan karakteriseres som naturtype med større tettheter > 25% ( Figur 36 ). Indre Porsangerfjord er preget av bløtbunnsområder og har lite hardsubstrat tilgjengelig der blåskjell kan finne lignende ideelle betingelser i tidevannssonen og beskyttelse fra predasjon.
Figur 34. Observasjoner av blåskjell (Mytilus edulis) og o-skjell (Modiolus modiolus) og deres tettheter i Indre Porsangerfjord. Enkelte observasjoner er også visst (kryssene).
Figur 35. 1-års rekrutter av blåskjell på bunn (videolinje 56 i Ressikkä) sammen med fintrådete alger. Tareskogen i samme området var dekket av små blåskjell.
Figur 36. Blåskjellbunn på en bergvegg i Djupvika sammen med tang (Fucus spp.).
O-skjell ble observert på 16 videolinjer ( Figur 34 ), ofte blant ruglbunn, men individene sitter ofte litt nedgravd i sedimentet og er dekket med skorpeformede rødalger, og er derfor vanskelig å se på video. Likevel må det regnes med at arten er utbredd i Indre Porsangerfjord der sedimentet er litt grovere. Ingen av observasjonene møter derimot kriteriene til å være en O-skjellbunn (minst > 25%). På videolinje 11 utenfor Hamnholmen ( Figur 37 ) var det observasjoner av O-skjell som ble klassifisert med tetthetsklassen 5-25%.
Figur 37. O-skjell på videolinje 11 i den ytre delen av foreslått verneområdet utenfor Hamnholmen. Denne linjen hadde en del døde o-skjell og kryptiske individer.
4.12 - Haneskjellbunn
Haneskjell (Chlamys islandica, Figur 38) er en subarktisk kamskjellart utbredt i det nordlige Atlanterhavet, fra Grønland og Canada i vest til Norge, Island og Færøyene i øst. Langs norskekysten forekommer haneskjell hovedsakelig fra Lofoten og nordover, inkludert i fjorder med terskler og hardbunnsområder (stein, grus og sand) på ca. 10–100 m dyp og temperaturer mellom 1,5 og 10 oC (Wiborg, 1963). Arten har sin hovedutbredelse rundt Bjørnøya og Svalbard. I tillegg er det kjente haneskjellfelter på Straumflaket ved Jan Mayen. I perioden 1985-1992 pågikk det et omfattende kommersielt fiskeri av haneskjell rundt Svalbard, men på grunn av overfiske ble haneskjellfeltene stengt. Det har lenge vært kjent at det er forekomst av haneskjell i betydelige mengder i enkelte fjorder i Nord-Norge. Skjellet ble den gang brukt som agn i lokale fiskerier, men det finnes ingen data om omfanget av dette fisket. På 1960-tallet ble mulige kommersielle forekomster av haneskjell kartlagt, blant annet i Porsangerfjorden (Wiborg, 1963). Fangstaktiviteten langs kysten har likevel vært minimal på grunn av svakt marked. Det finnes noe dykkebasert høsting for direktesalg til restauranter, men omfanget er ukjent.
Haneskjellet er en saktevoksende art med en maksimal skallhøyde på 120-130 mm og kan bli opptil 30 år gamle. Skjellet består av to buede skalldeler med smale, tettsittende ribber på begge skalldelene. Området ved hengslene er asymmetrisk der et «øre» typisk er større enn det andre (Figur 38). Skjellet lever av å filtrere sjøvann for planteplankton, mikroorganismer og dødt organisk materiale. Ved høye tettheter representerer haneskjell en naturtype med sterk kobling mellom miljøet i vannsøylen og produksjon på bunn. Haneskjellbanker utgjør et tredimensjonalt habitat som utgjør oppvekst- og leveområde for en rekke dyregrupper. Dyregrupper som observeres med video eller kommer med når prøver hentes opp fra haneskjellbankene er: svamp, nesledyr, mangebørsteormer, havedderkopper, krepsdyr, skallus, snegl, muslinger, armføttinger, mosdyr, pigghuder, sjøpung og fisk. Av alger er det rødalger som forekommer hyppigst (kalkalger og blad- og buskformede).
Haneskjell er særkjønnet, det vil si at hvert enkelt skjell enten er hann eller hunn. Kjønnsproduktene bygges opp i løpet av vinteren og våren, og gyting av egg og sperm skjer i løpet av juni måned. Befruktningen skjer i de frie vannmassene og larvene lever pelagisk i flere uker før de fester seg på bunnen (bunnslår) ved hjelp av festetråder (byssus), i likhet med blåskjell og en del andre muslinger. At skjellet er festet til bunnen gjør at arten kan leve i områder med sterk strøm. Yngelen fester seg gjerne på tomme skall fra døde haneskjell, på tare, på ruglbunn eller på andre harde overflater. I motsetning til mange andre muslinger er hanskjellet i stand til å slippe festetrådene og løfte seg fra bunnen ved å slå sammen de to skallhalvdelene, og dermed skape en jetstrøm som gjør det mulig for skjellet å svømme over korte avstander. Dette gjør de i hovedsak for å unnslippe predatorer som sjøstjerner.
De største kystbestandene av haneskjell i Troms og Finnmark ble frem til 2007 overvåket gjennom HI sitt overvåkingsprogrammet for haneskjell og i perioden 2009-2019 ble haneskjellforekomstene kartlagt gjennom «Nasjonalt program for kartlegging av marint biologisk mangfold». Haneskjellfeltene i Porsangerfjorden er konsentrert på den indre del av fjorden og kartleggingen visste et større haneskjellfelt rundt Ivarholmen (Figur 40). Kartleggingen bekreftet at de historisk kjente større forekomstene fortsatt eksisterer, men kan være negativt påvirket av miljøendringer, spesielt i områder hvor kongekrabben har etablert seg i høyt antall og beiter på skjell. Som kaldvannsart med veldig spesifikt habitatsbehov er haneskjell spesielt følsomme for klimaendringer og er i stor grad eksponert for negative effekter av økende temperaturer og havforsuring.
Haneskjellbunn er ikke definert som forvaltningsrelevant naturtype (Bekkby m.fl., 2021) fordi kamskjell og haneskjell ikke ble vurdert å oppfylle kriteriene i Stortingsmelding 14. Likevel vurderes naturtypen haneskjell som viktig for fiskeriforvaltning og haneskjellfelt er derfor inkludert i forslaget til «Forvaltningsrelevante naturenheter i sjø" under funksjonsområder (Marquez m.fl., 2024).
4.12.1 - Sammendrag fra kartleggingen 2025
Under kartlegging i Indre Porsangerfjord ble forekomst av haneskjell kalt «haneskjellbunn» og dekningsgrad registrert. I en fiskerisammenheng er tetthet (individer/m2) mer relevant enn dekningsgrad, men målet med denne studien var å kartlegge arter og naturtyper, ikke gjennomføre en ressurskartlegging. Kartleggingen viste at haneskjell var vanlig i ytre delen av kartleggingsområdet, hovedsakelig på blandingsbunn (Figur 39) fra 15 til 60 meters dybde, med enkelte individer så dypt som 85 meter. Det ble funnet haneskjell på 39 av de 65 videolinjene (Vedlegg 2, Tabell 6), der haneskjell oftest var en av mange arter. 14 videolinjer hadde seksjoner med en estimert dekningsgrad > 25% og kan karakteriseres som haneskjellbunn etter gitt definisjon (Figur 40). Tidligere kartlagt kjerneområde for haneskjell nordvest for Reinøya (Ivarholmen) ble bekreftet, men også sørvest fra Reinøya, rundt Mámmal, er det trolig en større forekomst med haneskjell (Figur 40). Substratet her er grusholdig, slamholdig sand og sand, grus og stein (NGU) som tilsvarer substratet funnet nordøst fra Reinøya. Mérillet m.fl. (2022) fant også større mengder av haneskjell mellom Olggut og Jatka i en bomtrålundersøkelse fra 2011. Det er mange mindre observasjoner både lenger ut og innover mot øst i Indre Porsangerfjord. Haneskjell ble ofte observert i forbindelse med ruglbunn og en del juvenile haneskjell ble observert, men størrelse sammensetning og dermed rekrutering ble ikke nærmere undersøkt.
Det ble funnet kongekrabbe på de fleste av haneskjell lokalitetene (Vedlegg 2, Tabell 6) og predasjon på haneskjell ble dokumentert med videoopptak. Det er godt kjent at haneskjell er et foretrukket byttedyr av kongekrabben (Lis Lindal Jørgensen & Primicerio, 2007; Michelsen, 2011) men i hvilken grad dette påvirker rekrutteringen og biomasse til bestanden er ikke undersøkt tilstrekkelig. Det antas at haneskjellbunn med rikt tilknyttet fauna er mindre sårbare for krabbepredasjon enn bunn med få assosierte arter som er alternative byttedyr (Lis Lindal Jørgensen & Primicerio, 2007). En studie fra Russland viste lav forekomst av haneskjell i krabbenes diett på intakte haneskjellbunner, i motsetning til haneskjellbunner som var blitt høstet, der krabbene beitet på avfall fra haneskjellbearbeiding og individer som var skadet av høstingen (Anisimova m.fl., 2005).
Figur 39. Haneskjellbunn på videolinje 47. En kongekrabbe gjemmer seg bak en sjøanemone av slekten Urticinia.
Figur 40. Videolinjer med haneskjell fra kartlegging 2025. Kartet viser også kjente områder med større haneskjellforekomst (fra Nasjonalt program for kartlegging av marint biologisk mangfold - Kyst) og område med flere observasjoner rundt Mámmal.
4.13 - Korallforekomster
Koralldyr er en fellesbetegnelse for marine dyr i rekken nesledyr (Cnidaria) som lever enkeltvis eller i kolonier, og som ofte danner kalkskjelett. Koraller forekommer ofte på fastbunn som stein og blokk, men kan også finnes på blandet eller bløtbunn. Korallforekomster etter håndbok 19 omfatter store rev av Desmophyllum pertusum og alle tette bestander av hornkoraller (Direktoratet for naturforvaltning, 2007). Som viktige leveområder for en del truete arter er korallrev, hardbunnskorallskog og bambuskorallskog inkludert som forvaltningsrelevante naturenheter (Bekkby m.fl., 2021) og rødlistet som egne naturtyper (Artsdatabanken, 2025). De fleste av disse naturtypene forekommer på dypere vann (>100 meter), både utenfor kysten og i fjordene opp til Troms, men er ikke dokumentert i Indre Porsangerfjord.
Korallsamfunn dominert av blomkålformede oktokoraller (Figur 41) fra slektene Gersemia, Duva, Drifa og Pseudodrifa forekommer hovedsakelig på harde eller heterogene bunnsubstrater. Disse habitatene betegnes i faglitteraturen ofte som blomkålkorallhager (Lene Buhl-Mortensen m.fl., 2019; Davies m.fl., 2017). Slike ansamlinger er dokumentert både i nordvestlige og sørøstlige havområder rundt Island (Lene Buhl-Mortensen m.fl., 2019), langs deler av norskekysten (L Buhl-Mortensen m.fl., 2012; Dunlop m.fl., 2020; Oskars m.fl., 2025) og Grønland (Long m.fl., 2020). Taksonomien til bløtkorallfamilien har nylig blitt revidert, og slekten Gersemia er nå plassert i en egen familie. Det er utfordrende å skille disse slektene fra hverandre ved hjelp av video alene og i denne studien omtales disse derfor under fellesbetegnelsen bløtkoraller. På bakgrunn av sårbarheten mot bunntråling og andre fysiske inngrep (Long m.fl., 2020) har slike bløtkorallhager blitt klassifisert som sårbare marine habitater av flere forvaltningsaktører, inkludert North East Atlantic Fisheries Commission (NEAFC, 2014) og er inkludert under OSPAR som en del av naturtypen «Korallhager». Partikulært avfall som slippes ut fra lakseoppdrettsanlegg kan ha en effekt på tettheter av slike bløtkorall og er en relevant trussel i nærheten av anlegg på Norskekysten (Dunlop m.fl., 2021). Det er tidligere dokumentert større mengder av bløtkorall fra en bomtrål undersøkelse på vestsiden av Indre Porsangerfjord (Mérillet m.fl., 2022).
Figur 41. Bløtkorall (i slekten Gersemia sp.) på blandet mudderbunn i Roddenjarga på rundt 45 m dyp. Det vises også en uidentifisert svamp til høyre.
I videre forstand omfatter koralldyr også anemoner (Actiniaria), sjøpenner (Pennatulacea) og sylindersjøroser (Cerianthidae), som er vanlig i norske fjorder, både på grunt og dypt vann, og har blant annet blitt dokumentert i Porsangerfjorden (Søvik m.fl., 2020). Ingen av disse er derimot en anerkjent naturtype i Norge og har ikke blitt systematisk kartlagt i Indre Porsangerfjord. Sjøfjærbunn er inkludert under OSPAR som en del av habitatet "sjøfjær og gravende megafauna" og sylindersjørosebunn er på ICES listen over VME som «Tube-dwelling anemone aggregations» (ICES, 2020).
4.13.1 - Sammendrag fra kartleggingen 2025
Det ble funnet bløtkorall som dannet «hager» eller på «bløtkorallbunn» på 17 av 65 videolinjer (Figur 42). Dette samfunn er mest utbredt på skråninger av de dype bassengene i fjorden som Roddenjarga og vest av Reinøya på dybder fra 40 til 100 meter, og tidligere funn fra (Merillet m.fl., 2022) er også inkludert i Figur 42. Den mest dominante slekten observert er trolig Gersemia sp. som er vanlig i store deler av Barentshavet og resten av polare farvann (Williams & Lundsten, 2009), men er ikke sikkert artsbestemt. I Norske farvann er slekten mest representert av arten G. fructicosa og G. rubiformis, som begge har enkeltregistreringer i Indre Porsangerfjord (Data fra Artskart). Ofte så ble bløtkorallene observert sammen med vorteanemoner ( Hormathia sp.). Slike samfunn er kjent fra Barentshavet, i områder med arktiske vannmasser eller påvirkning av arktisk vann ( Mareano ). Det ble observert spesielt tette forekomst av bløtkorall på videolinjen 39 og videoen ble brukt for å estimere tettheter på to utvalgte seksjoner innafor naturtypen (125 m og 45 m). For disse seksjoner ble det beregnet en tetthet av 2.6 - 3.6 ind. per kvadratmeter (antatt at middels bredde av kamera-synsfeltet fra GoPro tilsvarte 1.15 m, se seksjon 5.1). Long m.fl. (2020) foreslo å klassifisere forekomst av bløtkorall med tettheter > 1 ind./m2 som et sårbart habitat. Bløtkoraller, blant annet Gersemia spp. øker kompleksiteten av havbunnen og byr på habitater til andre arter. Embryoutviklingen hos kurvstjerner (Gorgonocephalus spp.) for eksempel, foregår blant annet inne i korallvev, og juvenile individer kan sitte festet på utsiden av koloniene mens de beiter (Long m.fl., 2020; Patent, 1970). Juvenile Gorgonocephalus spp. ble observert på blomkålkoraller i det analyserte videomaterialet fra Indre Porsangerfjord, noe som støtter denne teorien.
Det ble funnet tette ansamlinger av vorteanemoner på mange videolinjer, som kan anses å danne et karakteristisk habitat i kartleggingsområde på dypere vann > 50m («anemonebunn»). Det antas at det finnes flere lokasjoner med vertikale vegg eller overheng som er foretrukket habitater til anemoner. Disse har ikke blitt kartlagt i Porsangerfjorden fordi det kreves bruk av ROV, men dykkere har for eksempel dokumentert tette forekomst av Metridium senile på Laiva i den østlige delen av Indre Porsangerfjord (pers. komm. Bjørn Gulliksen, Figur 15 og kart Figur 13 ).
Sylindersjøroser ble funnet på 3 videolinjer (1, 12, 47) på sandbunn på grunt vann og er trolig arten Cerianthus lloydii ( Figur 43 ) . Arten er vanlig i beskyttede områder langs hele kysten. Sylindersjøroser er vanskelig å bestemme til art fra video og det er krevende å ta fysiske prøver, noe som bidrar til at taksonomien i denne gruppen er dårlig kjent.
Figur 42. Korallforekomster i Indre Porsangerfjord kartlagt i 2025. Bløtkorallbunn, «sylindersjørosebunn» og "anemonebunn" fra videoobservasjonene og tidligere funn fra Merillet m.fl. 2022 er visst.
Figur 43. Tette ansamlinger av Cerianthus lloydii på få meters dybde på videolinje 1 i Indre Porsangerfjord.
4.14 - Svampsamfunn
Svamp (Porifera) er klassiske filterspisere og skaffer seg næring ved å trekke vann gjennom et system av kanaler. Dette filteret er så tett at de kan fange opp både små partikler og oppløste næringsstoffer. Det er registrert over 300 arter av ulike svamp i norske farvann (Artsdatabanken). Det er dermed en gruppe med stor diversitet som kan forekomme på ulike substrater, fra loddredde fjordvegger til bløtbunn i dypere bassenger. Såkalte svampskog på hardbunn er tette ansamlinger av store eller mellomstore arter, særlig innen slektene Phakellia, Axinella, Mycale, Geodia og Antho. Bløtbunnsvampesamfunn finnes flekkvis i de dype bassengene i noen norske fjorder og består ofte av arter innen slekten Thenea, Polymastia og Stylocordyla.
Figur 44. Svamp forkommer gjerne på skråninger med hardbunn som ikke kartleggingen i 2025 dekket godt nok. Her vises en art fra familien Polymastiidae, fotografert under et dykk på Laiva. Foto: Bjørn Gulliksen.
Svamp har en viktig funksjon i økosystemet ved sin rolle i karbon‑ og næringsstoffkretsløpet og som habitat byggere (Bell m.fl., 2023). Svampskoger gir leveområder til en lang rekke andre organismer, fra mikroorganismer til fisk, som bruker både selve svampene og mellomrommene i bunnen som skjul og habitat. Svamp er sårbare for menneskelig påvirkning, spesielt aktiviteter som fører til fysisk forstyrrelse av bunnen, som bunntråling, svampsamfunn er derfor på OSPAR sin liste over truede og minkende habitat. Økte temperaturer i havet (se oversiktsartikkel av Bell m.fl. 2023) eller utslipp fra akvakultur kan påvirke dem negativt (Dunlop m.fl., 2021; Kutti m.fl., 2016). Dersom en svampskog blir ødelagt, kan det ta svært lang tid før området er tilbake i opprinnelig tilstand på grunn av den langsomme veksten hos mange svamparter. Svampsamfunn er vurdert som en forvaltningsrelevant naturenhet i Norge (Bekkby m.fl., 2021). I Norsk rødliste for naturtyper 2025 inngår svampdominerte bunnsamfunn i flere NiN‑naturtyper for marine bunnsystemer, og flere av dem er rødlistet, men dette gjelder hovedsakelig dypere forekomst >150 meter (for eksempel «Dyp svampskog på sedimentbunn i atlantisk vann» og «Dyp svampskog på mudderbunn i atlantisk vann» som er nær truet – NT). Svampskoger <150 meter, for eksempel «Eksponert dyp svampskog på fastbunn i kystvann» er vurdert som LC.
Kunnskapen om artene og utbredelsen av svamp i Porsangerfjorden er svært mangelfullt, med bare noen få eldre registreringer i Artskart. Dette skyldes hovedsakelig mangelen på målrettet kartlegging og taksonomisk ekspertise. Det er dokumentert noen få svampforekomster fra familien Polymastiidae (Figur 44) i bomtrål-undersøkelser i Indre Porsangerfjord (Mérillet m.fl., 2022), ellers er det registrert større mengder med svamp (for eksempel Axinellidae) på vestsiden av ytre Porsangerfjorden (Søvik m.fl., 2020).
4.14.1 - Sammendrag fra kartleggingen 2025
Flere, ikke-habitat dannende, svamparter ble observert i kartleggingsområdet, blant annet Axinella infundibuliformis, Mycale lingua, individ i slektene Phakellia, Suberites, Geodia, Sycon og familien Polymastiidae (Figur 44, Figur 45). Spesielt på israndavsetningene var svamp utbredd (Figur 46). De fleste observasjoner av svamp ble gjort på fjell, blokk og stein. Denne substrattype er mer utbredt nord for terskelen ved Reinøya (Figur 3). Bare en videolinje ble klassifisert som hardbunnsvampsamfunn (videolinje 40 vest av Reinøya, Figur 46). Hardbunnsvampsamfunn finner man ofte på bratte skråninger eller fjellvegger der strømmen er høy, disse ble habitatene er underrepresentert i denne kartleggingen siden disse bratte områdene er vanskelig å kartlegge med en sleperigg. Så naturtypen kan være mer utbredt enn denne kartleggingen viser.
Figur 45. Ulike arter av svamp observert under kartlegging av Indre Porsangerfjord i 2025 (fra venstre: ukjent art, Mycale lingua, cf. Suberites sp., Axinella infundibuliformis og en uidentifisert art, Weberella bursa (familie Polymastiidae), svampesamfunn med ulike arter og anemoner på stein).
Figur 46. Observasjoner av svamp (Porifera) i Indre Porsangerfjord. Bare en lokalitet på videolinje 40 ble karakterisert som svampesamfunn.
5 - Kongekrabbe
Kongekrabben ble introdusert i Barentshavet i 1960 tallet med hensikt å etablere et fiskeri i Russland (Orlov & Ivanov, 1978). I Norske farvann er kongekrabben (Figur 47) en typisk kysttilknyttet art, med høyeste tettheter i fjordene. Den første fangsten av kongekrabben i Porsangerfjorden er registrert rundt 2000-tallet og et kommersielt fiskeri i den ytre fjorden begynte i 2008. Fangst fra overvåkningstokt (HI) viser at før 2010 var det lite kongekrabbene i indre delen (Figur 48), særlig sør fra terskelen, og indre Porsanger ble ikke inkludert i de årlige bestandskartleggingstoktene før 2012. Men de seinere årene så ble det etablert faste stasjoner i den indre østlige delen, og video ble introdusert som en ny kartleggingsmetode for å estimere tettheter av krabber. I de siste 15 år har kongekrabben stadig blitt vanligere i de indre delene av fjorden og den finnes både på grunt og dypere vann. I dag så er Indre Porsangerfjord regulert innenfor kvoteregulert område for fiskeri. Landingene i hele Porsangerfjord har gått ned i de siste årene fra rundt 800 i 2018 til 200 tonn i 2024 (Hjelset m.fl., 2025).
Kongekrabben er en kaldvannsart og foretrekker temperaturer rundt 4 ºC, hovedsakelig fordi larveutviklingen er forsinket ved temperaturer under 2 ºC (Stevens, 2014). Voksne krabber kan derimot fort reagere på endringer i temperatur på grunn av sin store mobilitet (Aune m.fl., 2022). Et rikt bløtbunndyrsamfunn på dypvann og særlig forekomsten av muslinger og skjell gir et godt næringsgrunnlag for kongekrabben (Fuhrmann et al., 2017) og noen studier antyder at fauna i ytre delen av fjorden har blitt beitet ned over årene (Fuhrmann et al., 2015; Pedersen et al., 2018). Bunndyrsamfunnet fra et årlig bomtråltrekk mellom 2012-2023 vest av Reinøya tyder på en endring i artssamfunn i perioden (Hvingel m.fl., 2023). Nyere studier har gitt grunnlag for håp om at kongekrabben kan bidra til reetablering av tareskog gjennom sitt predasjonstrykk på kråkeboller (Christie m.fl., 2024; Pedersen m.fl., 2018).
Figur 48. Utvikling av fangst av kongekrabbe i HI sine årlige bestandskartleggingstoktene. Tallene viser antall krabber per redskap med ulikt fangstareal. Det ble slått sammen data fra 2 år i hver kart. Data fra 2007-2009 er fra tokt gjennomført av Universitetet i Tromsø.
5.1 - Sammendrag fra kartleggingen 2025
Det ble observert kongekrabber på 47 av 65 videolinjer, på dybder mellom 5 til 170 m (Figur 49). Krabbene ble registrert i ulike habitater blant annet i tareskog, på haneskjellbunn og på ruglbunn (Figur 50). Funnene fra kartleggingen støtter tidligere funn om at både små og store krabber forkommer på grunnere vann (< 50 m), og at de er hyppige gjester i tareskog der de beiter på muslinger og kråkeboller avhengig av tettheten til disse byttedyrene (Christie m.fl., 2024). Beiting av kongekrabben på makrofauna i grunnere områder i indre Porsanger er muligens en viktig økologisk faktor som påvirker forekomstene av disse dyrene (se også Christie mfl. 2024). Mens beiting på kråkeboller kan være positiv for rekruttering av tareskog (Christie m.fl., 2024; Pedersen m.fl., 2018), så har dette trolig negative konsekvenser på andre byttedyr, blant annet haneskjell (L. L. Jørgensen m.fl., 2005). Det ble observert at når krabben graver etter små virvelløse dyr, snur den rugl kuler og forstyrrer sedimentet (Figur 50). For å si noe om omfanget av beiteeffekten av krabben og fysisk forstyrrelse på ruglbunn må dette derimot studeres nærmere og kvantifiseres. På videoobservasjonene var krabbene omtrent like tallrike i taresamfunn som på rugl og haneskjellbunn, og siden kongekrabben er en generalist så klarer den å utnytte mange forskjellige matressurser (Fuhrmann m.fl., 2017).
En nylig gjennomført bløtbunnsundersøkelse under samme prosjekt skal gi flere opplysninger om hvordan beiting fra kongekrabbe i de dype bassengene på østsiden i Indre Porsangerfjord har påvirket dyresamfunnet. Undersøkelsen skal sammenligne antall, biomasse og diversitet til makrofauna sammenlignet med et tidligere studie (Oug & Fuhrmann, 2013) gjort i samme området da kongekrabben ikke var så tallrikt. Foreløpige resultater viser at større individer og dyr, som for eksempel den ellers tallrike mudderbunnsjøstjernen Ctenodiscus crispatus, har nærmest forsvunnet fra prøvene.
Figur 49. Observasjoner av kongekrabber på videolinjer fra kartlegging av Indre Porsangerfjord i 2025.
Figur 50. Kongekrabbe på rugl i Indre Porsangerfjord. Krabben graver etter smådyr som gjemmer seg mellom rugl og i grusen.
6 - Oppsummering
Sammendraget av kjent kunnskap om marint mangfold og karleggingen av naturtypene sommeren 2025 har vist at Indre Porsangerfjord har et variert marint mangfold, med rike forekomster av rødlistete arter og naturtyper, og et bunnsamfunn som delvis skiller seg fra ytre områder i Porsangerfjorden og omfatter flere arktiske arter.
På grunt vann ble det påvist hyppige forekomster av sukkertareskog og ruglbunn, begge naturtyper som er vurdert som rødlistede i Norge. Sukkertareskogen har stor økologisk betydning, blant annet som habitat for en rekke arter og som oppvekstområde for fisk. Kartleggingen og eksisterende kunnskap viste at det er tegn til gjenvekst i Indre Porsangerfjorden. Spesielle litorale forekomster av sukkertare er et særlig kjennetegn i vest av Indre Porsangerfjord. Ruglbunn har i liten grad vært kartlagt tidligere i Indre Porsangerfjord, og videoobservasjoner viser et rikt bentisk samfunn knyttet til ruglbunn, med blant annet haneskjell, O-skjell og mange virvelløse dyr. Ruglbunn fungerer som oppvekst‑ og leveområde for mange organismer og bidrar til økt lokal biodiversitet. Ny kunnskap om både forekomst og utbredelsen av ruglbunn i fjorden er derfor verdifull, både for videre forvaltning og for å kunne følge utviklingen av naturtypen under klimaforandringer over tid.
Kartleggingen viste også at mange av de kartlagte naturtyper forekommer i typisk i mosaikk med andre arter. Områdene fremstår sjelden som dominert av én enkelt naturtype, men heller som komplekse blandingstyper. Selv om dette kan gi relativt lav estimert dekningsgrad for enkeltstående naturtyper, bidrar nettopp dette samspillet mellom arter og substrater til høy biodiversitet og økosystemfunksjon. Slike blandingsnaturtyper kan være minst like verdifulle som mer ensartede forekomster. Haneskjellforekomst i Porsangerfjorden er begrenset til indre delen, og det viser seg at arten er utbredd med flekkevis høye tettheter til tross for et trolig stort beitetrykk fra kongekrabben.
De dype bassengene med bløtbunn i Østerbotn og Roddenessjøen skiller seg ut på grunn av sitt kalde bunnvann hele året. Høy bentisk produksjon av infauna og en rekke kaldtvannsarter, samt en tett rekebestand karakteriserer dette området. Her og i de dypere skråninger i Indre Porsangerfjord ble det påvist relativ tette forekomster av bløtkoraller. Slike korallsamfunn er ellers primært kjent fra kaldere og mer eksponerte havområder. Korallskog er generelt sårbar for fysisk påvirkning som bunntråling, oppankring og økt sedimentasjon, og deres utbredelse i fjorden understreker områdets arktiske karakter. Spesielt israndavsetningene i området utenfor utredningsområdets nordlige grenser har visst seg å være habitat for en del større svampearter og bløtkorall. Typiske hornkorall- og svampskoger som er kjent fra andre fjorder lenger sør i Norge og Barentshavet har derimot ikke blitt funnet.
Mudderbunnsflater er utbredt i Indre Porsangerfjord og utgjør et viktig habitat for mange rødlistete fuglearter og hele den indre fjorden benyttes som næringsområde. I lys av den globale nedgangen i mange sjøfuglbestander, og med flere rødlistede arter knyttet til området, fremstår Indre Porsangerfjord som et av de viktigste sjøfuglområdene i Norge. Indre Porsangerfjord skiller seg også ut ved å huse en egen bestand av steinkobbe.
Kartlegging av marine naturtyper innebærer betydelige metodiske utfordringer. Mange forekomster, særlig av haneskjell og koraller, er småskala og flekkvis, og vil ikke nødvendigvis komme tydelig frem i kart i målestokk 1:20 000. Rådata i større målestokk (for eksempel 1:5 000) gir mer presis informasjon om faktiske forekomster. I tillegg er flatedekkende kartlegging i marine miljøer vesentlig mer komplisert enn på land, og punktobservasjoner gir ikke et fullstendig bilde av utbredelsen. For marine naturtyper kreves det ofte omfattende modelleringsarbeid, forutsatt god dekning av miljøvariabler og tilstrekkelig datagrunnlag. Feltarbeidets gjennomførbarhet begrenses også av vær‑, vind‑ og strømforhold og slepekamera er ikke egnet for alle typer av terreng. Det er for eksempel sannsynlig at det finnes ytterligere forekomster av svamp og hardbunnsfauna på bratte vegger. Nøyere avgrensning av hver naturtype gjøres oftest med feltkampanjer som er spesifikt tilpasset hver enkelt naturtype, og om ønskelig, i tråd med den nylig oppdaterte kartleggingsveileder «Instruks for kartlegging og kvalitetsvurdering basert på Natur i Norge versjon 3» (Miljødirektoratet, 2026).
Indre Porsangerfjord har over tid gjennomgått en del økologiske endringer, blant annet knyttet til nedgang i lokale fiskebestander, beiting på tareskog fra kråkeboller og invasjonen av kongekrabben. Under kartleggingen ble det ikke observert omfattende nedbeitete tareskoger eller høye tettheter av voksne kråkeboller. Tvert imot, enkelte ytre lokaliteter i Indre Porsangerfjord viste tegn til gjenvekst av tareskog. Kongekrabbe ble ofte observert også på grunt vann under kartleggingsperioden i juli/august. Disse vil ikke inngå i bestandsestimatet og det finnes heller ingen dedikert overvåkning av effekten av kongekrabbe i for eksempel ruglbunn habitater.
Økte temperaturer er observert for målestasjonene i Indre Porsangerfjord. Klimaendringer forventes å utgjøre en betydelig framtidig påvirkningsfaktor for økosystemet. Disse kan få konsekvenser for utbredelsen av naturtypene, for eksempel tareskog som sliter under marine hetebølger (Moy & Christie, 2012) og ruglbunn som er påvirket av forsuring (Brodie m.fl., 2014) på grunt vann, samt for dyphavsfauna tilpasset stabile og nær arktiske forhold. Både i 2024 og 2025 har det vært marine varmebølger på sensommeren langs Norskekysten, i 2025 var det svært varmt både i overflatevannet, i dypvannet utenfor kysten og i fjordbassengene (Albretsen & Asplin, 2026; Mork, 2026). Konsekvensene av hetebølger for marine økosystemer i subarktisk er komplekse og ikke fullt forstått. Tareskogen i Indre Porsangerfjord antas til å forkomme på sitt lavere spektrum av temperaturtoleranse grensen, men i hvor vidt veldig grunne forekomst vil påvirkes av hetebølger er uvisst. Dette understreker behovet for videre forskning for å vurdere både direkte og indirekte effekter av klimaforandringer på ulike organismer og naturtyper, sånn at det kan utvikles best mulige strategier for forvaltning (Pecuchet m.fl., 2025).
Anisimova, N. A., Berenboim, B., Gerasimova, B., Manushin, I. E., & Pinchukov, M. (2005). On the effect of the red King crab on some components of the Barents Sea ecosystem. Ecosystem dynamics and optimal long-term harvest in the Barents Sea fisheries. Proceedings of the 11th Russian–Norwegian Symposium, Murmansk, Russia. IMR/PINRO Joint Report Series, 2005/2: 298–306.
Artsdatabanken (2021). Norsk rødliste for arter. Hentet [01.03.26] fra: https://www.artsdatabanken.no
Artsdatabanken (2025). Norsk rødliste for naturtyper. Hentet [15.01.26] fra: https://lister.artsdatabanken.no/naturtyper/2025
Asplin, L., Albretsen, J., Johnsen, I. A., & Sandvik, A. D. (2020). The hydrodynamic foundation for salmon lice dispersion modeling along the Norwegian coast. Ocean Dynamics, 70(8), 1151–1167.
Aune, M., Jensen, J. L., Siikavuopio, S. I., Christensen, G. N., Nilsen, K. T., Merkel, B., & Renaud, P. E. (2022). Space and habitat utilization of the red king crab (Paralithodes camtschaticus) in a newly invaded fjord in northern Norway. Frontiers in Marine Science, 9, 762087.
Bekkby, T., Bodvin2, T., Bøe, R., Moy, F. E., Olsen, H., & Rinde, E. (2011). Nasjonalt program for kartlegging og overvåking av biologisk mangfold - marint. Sluttrapport for perioden 2007-2010. RAPPORT L.NR. 6105-2011. Norsk institutt for vannforskning.
Bekkby, T., Rinde, E., Borgersen, G., Brkljacic, M. S., Christie, H., Fagerli, C. W., Gitmark, J. K., Jensen, M. T., Kile, M. R., Mjelde, M., Moy, S. R., Næss, R., Oug, E., Torp, Ø., Tveiten, L., & Walday, M. (2025). Naturtyper etter Miljødirektoratets instruks: Kartlegging av et utvalg av forvaltningsrelevante marine naturtyper, med variabler og metodikk. Norsk institutt for vannforskning. RAPPORT L.NR. 8155-2025. Norsk institutt for vannforskning.
Bekkby, T., Rinde, E., Oug, E., Buhl-Mortensen, P., Thormar, J., Dolan, M., Mjelde, M., Gitmark, J. K., Moy, S. R., Schneider, S., Gonzales-Mirelis, G., Systad, G., & Son, T. C. v. (2021). Forslag til forvaltningsrelevante naturenheter. RAPPORT L.NR. 7672-2021. Norsk institutt for vannforskning.
Bell, J. J., Strano, F., Broadribb, M., Wood, G., Harris, B., Resende, A. C., Novak, E., & Micaroni, V. (2023). Sponge functional roles in a changing world. Advances in Marine Biology, 95, 27–89.
Bjørge, A., & Jørgensen, L. L. (2013). Hvordan påvirkes Porsangerfjorden av kongekrabbe og klimaendringer? Havforskningsrapporten 2013. Fisken og Havet, 1-2013: 84-86. Havforskningsinstituttet.
Blake, C., & Maggs, C. A. (2003). Comparative growth rates and internal banding periodicity of maerl species (Corallinales, Rhodophyta) from northern Europe. Phycologia, 42(6), 606–612.
Bogstad, B., Røttingen, I., Sandberg, P., Solheim, B. T. V., Steinshamn, S. I., & Tjelmeland, S. (1995). Beskatningsstrategi for Norsk vårgytende sild. Fiskeridirektoratet; Rapporter og meldinger, 1995 NR 3.
Brodie, J., Williamson, C. J., Smale, D. A., Kamenos, N. A., Mieszkowska, N., Santos, R., Cunliffe, M., Steinke, M., Yesson, C., & Anderson, K. M. (2014). The future of the northeast A tlantic benthic flora in a high CO 2 world. Ecology and Evolution, 4(13), 2787–2798.
Bryn, A., Andersen, G. S., Bekkby, T., Bratli, H., Dervo, B., Dolan, M., Halvorsen, R.,, & Haugland, B. T., Horvath, P., Naas, A. E., van Soon, T., Thormar, J., Wollan, A.K., Zink, P. (2023). Hovedveileder for feltbasert kartlegging. Terrestrisk, limnisk og marin naturvariasjon etter NiN (3.0). Artsdatabanken, Trondheim.
Buhl-Mortensen, L., Buhl-Mortensen, P., Dolan, M., Dannheim, J., Bellec, V., & Holte, B. (2012). Habitat complexity and bottom fauna composition at different scales on the continental shelf and slope of Northern Norway. Hydrobiologia, 685(1), 191–219.
Buhl-Mortensen, L., Burgos, J. M., Steingrund, P., Buhl-Mortensen, P., Ólafsdóttir, S. H., & Ragnarsson, S. Á. (2019). Vulnerable marine ecosystems (VMEs): Coral and sponge VMEs in Arctic and sub-Arctic waters–Distribution and threats (Vol. 2019519): Nordic Council of Ministers.
Castro de la Guardia, L., Hernández Fariñas, T., Marchese, C., Amargant-Arumí, M., Myers, P. G., Bélanger, S., Assmy, P., Gradinger, R., & Duarte, P. (2023). Assessing net primary production in the northwestern Barents Sea using in situ, remote sensing and modelling approaches. Progress in Oceanography, 219, 103160.
Christensen-Dalsgaard, S., Mattisson, J., Norderhaug, K. M., & Lorentsen, S.-H. (2020). Sharing the neighbourhood: assessing the impact of kelp harvest on foraging behaviour of the European shag. Marine Biology, 167(9), 136.
Christensen, K. H., Albretsen, J., Asplin, L., Guldbrandsen Frøysa, H., Gusdal, Y., Iversen, S. C., Fjalstad Jensen, M., Askeland Johnsen, I., Melsom Kristensen, N., Næverlid Sævik, P., Sandvik, A. D., Simonsen, M., Skarðhamar, J., Sperrevik, A. K., & Trodahl, M. (2025). "Norkyst" version 3: the coastal ocean forecasting system for Norway (In press). EGUsphere, 2025, 1–22.
Christiansen, J. S., & Fevolden, S.-E. (2000). The polar cod of Porsangerfjorden, Norway; revisited. Sarsia, 85(3), 189–193.
Christie, H., Moy, F. E., Fagerli, C. W., Rinde, E., Strand, M., Tveiten, L. A., & Strand, H. K. (2024). Successful large-scale and long-term kelp forest restoration by culling sea urchins with quicklime and supported by crab predation. Marine Biology, 171(11).
Cieszyńska, A., & Stramska, M. (2018). Climate-related trends and meteorological conditions in the Porsanger fjord, Norway. Oceanologia, 60(3), 344–366.
Dalsøren, S. B., Albretsen, J., & Asplin, L. (2020). New validation method for hydrodynamic fjord models applied in the Hardangerfjord, Norway. Estuarine, Coastal and Shelf Science, 246, 107028.
Davies, J., Guillaumont, B., Tempera, F., Vertino, A., Beuck, L., Ólafsdóttir, S., Smith, C., Fosså, J., Van den Beld, I., & Savini, A. (2017). A new classification scheme of European cold-water coral habitats: implications for ecosystem-based management of the deep sea. Deep Sea Research Part II: Topical Studies in Oceanography, 145, 102–109.
Diehl, N., Laeseke, P., Bartsch, I., Bligh, M., Buck-Wiese, H., Hehemann, J.-H., Niedzwiedz, S., Plag, N., Karsten, U., & Shan, T. (2024). The significance of seasonal light and temperature interaction for the latitudinal distribution of seaweeds: biochemical and physiological raw data of a long-term multi-factorial experiment.
PANGAEA, https://doi.org/10.1594/PANGAEA.967510.
Direktoratet for naturforvaltning (2007). Kartlegging av marint biologisk mangfold. DN Håndbok 19-2001 Revidert 2007. Direktoratet for naturforvaltning.
Dunlop, K., Harendza, A., Bannister, R., & Keeley, N. (2021). Spatial response of hard-and mixed-bottom benthic epifauna to organic enrichment from salmon aquaculture in northern Norway. Aquaculture Environment Interactions, 13, 455–475.
Dunlop, K., Harendza, A., Plassen, L., & Keeley, N. (2020). Epifaunal habitat associations on mixed and hard bottom substrates in coastal waters of northern Norway. Frontiers in Marine Science, 7 - 2020.
Dutertre, M., Grall, J., Ehrhold, A., & Hamon, D. (2015). Environmental factors affecting maerl bed structure in Brittany (France). European Journal of Phycology, 50(4), 371–383.
Eilertsen, H. C., & Skarhamar, J. (2006). Temperatures of north Norwegian fjords and coastal waters: Variability, significance of local processes and air-sea heat exchange. Estuarine, Coastal and Shelf Science, 67(3), 530–538.
Elliott, S. A. M., Turrell, W. R., Heath, M. R., & Bailey, D. M. (2017). Juvenile gadoid habitat and ontogenetic shift observations using stereo-video baited cameras. Marine Ecology Progress Series, 568, 123–135.
Frantzen, S. (2007). Recruitment of blue mussels, Mytilus edulis L., on suspended collectors in Finnmark, North Norway (70–71°N). Marine Biology Research, 3(1), 37–48.
Fredericq, S., Krayesky-Self, S., Sauvage, T., Richards, J., Kittle, R., Arakaki, N., Hickerson, E., & Schmidt, W. E. (2019). The critical importance of rhodoliths in the life cycle completion of both macro-and microalgae, and as holobionts for the establishment and maintenance of marine biodiversity. Frontiers in Marine Science, 5, 502.
Freiwald, A. (1998). Modern nearshore cold-temperate calcareous sediments in the Troms District, northern Norway. Journal of Sedimentary Research, 68(5), 763–776.
Fuhrmann, M. M., Pedersen, T., & Nilssen, E. M. (2017). Trophic niche of the invasive red king crab (Paralithodes camtschaticus) in a benthic food web. Marine Ecology Progress Series., 565 113–129.
Fuhrmann, M. M., Pedersen, T., Ramasco, V., & Nilssen, E. M. (2015). Macrobenthic biomass and production in a heterogenic subarctic fjord after invasion by the red king crab. Journal of Sea Research, 106, 1–13.
Gagaev, S. Y. (2023). Growth Features of the Polychaete Worm Spiochaetopterus typicus (Chaetopteridae). Biology Bulletin, 50(7), 1648–1652.
Gagnon, P., Matheson, K., & Stapleton, M. (2012). Variation in rhodolith morphology and biogenic potential of newly discovered rhodolith beds in Newfoundland and Labrador (Canada). Botanica Marina, 55(1), 85.
Gagnon, K., Thormar, J., Fredriksen, S., Potouroglou, M., Albretsen, J., Gundersen, H., Hancke, K., Rinde, E., Wathne, C., & Norderhaug, K. M. (2024). Carbon stocks in Norwegian eelgrass meadows across environmental gradients. Scientific Reports, 14(1), 25171.
Hagen, N. T. (1983). Destructive grazing of kelp beds by sea urchins in Vestfjorden, northern Norway. Sarsia, 68(3), 177–190.
Hall-Spencer, J. M., Kelly, J., & Maggs, C. A. (2008). Assessment of maerl beds in the OSPAR area and the development of a monitoring program. Department of the Environment HaLGD, Ireland (ed), 34.
Hanssen, E. (1986). Porsanger bygdebok, bind 1. Fra eldre steinalder til 1910.
Haugland, K., Søvik, G., Zimmermann, F., & Strand, H. K. (2023). Teinefiske etter dypvannsreke (Pandalus borealis) i Norge-Kommersielle landinger og sammenligning av teinefiske i tre områder langs kysten. Rapport fra havforskningen 2023-9. Havforskningsinstituttet.
Hegseth, E., Svendsen, H., & von Quillfeldt, C. H. (1995). Phytoplankton in fjords and coastal waters of northern Norway: environmental conditions and dynamics of the spring bloom. In H. H. Skjoldal, C; Erikstad, KE; Leinaas, HP (Ed.), Ecology of fjords and coastal waters (pp. 45–72). Amsterdam: Elsevier Science B V.
Helias, M., & Burel, T. (2023). Maerl-associated macroalgae in the bay of Brest (Brittany, France). Marine Biodiversity, 53(1), 14.
Hjelset, A. M., Zimmermann, F., Ono, K., Bjånes Marcussen, J., Rosa Casla, A., Jenssen, M., & Berg, E. (2025). Kongekrabbe i norsk sone - status og rådgivning for 2026. Rapport fra havforskningen 2025-75. Havforskningsinstituttet.
Holst, J. C., & Slotte, A. (1998). Effects of juvenile nursery on geographic spawning distribution in Norwegian spring-spawning herring (Clupea harengus L.). ICES Journal of Marine Science, 55(6), 987–996.
Hvingel, C., Hjelset, A. M., Fuhrmann, M. M., Jenssen, M., & Zimmermann, F. (2023). Bestandsvurdering av kongekrabbe 2023 og råd for 2024. Rapport fra havforskningen 2023-49. Havforskningsinstituttet.
Jardim, V. L., Gauthier, O., Toumi, C., & Grall, J. (2022). Quantifying maerl (rhodolith) habitat complexity along an environmental gradient at regional scale in the Northeast Atlantic. Marine Environmental Research, 181, 105768.
Järnegren, J., Gulliksen, B., Husa, V., Malmstrøm, M., Oug, E., Berg, P. R., Bryn, A., Geange, S. R., Hindar, K., & Hole, L. R. (2023). Assessment of risk and risk-reducing measures related to the introduction and dispersal of the invasive alien carpet tunicate Didemnum vexillum in Norway. VKM Report, 2023(7), 1–124.
Jørgensen, L. L., Manushin, I. E., Sundet, J. H., & Birkley, S.-R. (2005). The international introduction of the marine red King crab Paralithodes camtschaticus into the Southern Barents Sea. ICES Cooperative Research Report, 277, 18.
Jørgensen, L. L., & Primicerio, R. (2007). Impact scenario for the invasive red king crab Paralithodes camtschaticus (Tilesius, 1815) (Reptantia, Lithodidae) on Norwegian, native, epibenthic prey. Hydrobiologia, 590(1), 47–54.
Kamenos, N. A., Moore, P. G., & Hall-Spencer, J. M. (2004). Small-scale distribution of juvenile gadoids in shallow inshore waters; what role does maerl play? ICES Journal of Marine Science, 61(3), 422–429.
Koch, M., Jungblut, S., Götze, S., Bock, C., & Saborowski, R. (2025). Marine heatwaves in the Subarctic and the effect of acute temperature change on the key grazer Strongylocentrotus droebachiensis (Echinoidea, Echinodermata). ICES Journal of Marine Science, 82(5), fsae181.
Krayesky-Self, S., Schmidt, W. E., Phung, D., Henry, C., Sauvage, T., Camacho, O., Felgenhauer, B. E., & Fredericq, S. (2017). Eukaryotic life inhabits rhodolith-forming coralline algae (Hapalidiales, Rhodophyta), remarkable marine benthic microhabitats. Scientific Reports, 7(1), 45850.
Kutti, T., Krogness, C., & Husa, V. (2016). Effekter av utslipp av oppdrettsfôr på svamp. Rapport fra havforskningen 2016-1. Havforskningsinstituttet.
Lavenère-Wanderley, A. A., Asp, N. E., Thompson, F. L., & Siegle, E. (2021). Rhodolith mobility potential from seasonal and extreme waves. Continental Shelf Research, 228, 104527.
Legrand, E., Taormina, B., Grall, J., Sævik, P. N., Lelièvre, Y., Pinsivy, L., Peña, V., & Husa, V. (2024). Salmon farming alters the structure and functioning of Norwegian maerl bed communities. Aquatic Conservation: Marine and Freshwater Ecosystems, 34(4), e4142.
Leopold, P., Renaud, P. E., Ambrose Jr, W. G., & Berge, J. (2019). High Arctic Mytilus spp.: occurrence, distribution and history of dispersal. Polar Biology, 42(1), 237–244.
Long, S., Sparrow-Scinocca, B., Blicher, M. E., Hammeken Arboe, N., Fuhrmann, M. M., Kemp, K. M., Nygaard, R., Zinglersen, K., & Yesson, C. (2020). Identification of a Soft Coral Garden Candidate Vulnerable Marine Ecosystem (VME) Using Video Imagery, Davis Strait, West Greenland. Frontiers in Marine Science, Volume 7 - 2020.
Mankettikkara, R. (2013). Hydrophysical characteristics of the northern Norwegian coast and fjords. (Doctoral thesis), University of Tromsø, Norway.
Marquez, J. F., Meeren, G. v. d., Meeren, T. v. d., Albretsen, J., Ross, R., Steen, H., Norderhaug, K. M., Halvorsen, K., Mortensen, S., Knutsen, H., Thormar, J., Jorde, P. E., Juliussen, E. H., Kroglund, T., Brandt, C. F., Søvik, G., Kutti, T., Naustvoll, L.-J., Skern-Mauritzen, M., Aarflot, J. M., Moland, E., Berg, F., Grefsrud, E. S., Zimmermann, F., Johannesen, E., Langhelle, E., Midtun, H. A., Godiksen, J. A., Fall, J., Skjæraasen, J. E., Korsbrekke, K., Aune, M., Grønnevik, S., Buhl-Mortensen, P., Berg, E., Nedreaas, K., Wienerroither, R., Huserbråten, M., Kvamme, C., . . . Espeland, S. H. (2024). Liste over forvaltningsrelevante naturenheter: Oppfølgende informasjon til rapporten "Forvaltningsrelevante naturenheter i sjø". Rapport fra havforskningen 2024-53. Havforskningsinstituttet.
Mérillet, L., Skogen, M. D., Vikebø, F., & Jørgensen, L. L. (2022). Fish Assemblages of a Sub-Arctic Fjord Show Early Signals of Climate Change Response Contrary to the Benthic Assemblages. Frontiers in Marine Science, 9.
Michelsen, H. K. (2011). Prey selection of the red king crab (Paralithodes camtschaticus) preying on lumpfish eggs (Cyclopterus lumpus), sea urchins (Strongylocentrotus droebachiensis) and scallops (Chlamys islandica). (Master thesis), University of Tromsø, Norway.
Miljødirektoratet (2026). Marine naturtyper: Instruks for kartlegging og kvalitetsvurdering basert på Natur i Norge. Rapport nr. M-3130. Miljødirektoratet.
Mooney, B. P., Iversen, M. H., & Norrbin, M. F. (2023). Impact of Microsetella norvegica on carbon flux attenuation and as a secondary producer during the polar night in the subarctic Porsangerfjord. Frontiers in Marine Science, 10, 996275.
Moore, K. A., & Short, F. T. (2006). Zostera: Biology, Ecology, and Management. In A. W. D. Larkum, R. J. Orth, & C. M. Duarte (Eds.), SEAGRASSES: BIOLOGY, ECOLOGYAND CONSERVATION (pp. 361–386). Dordrecht: Springer Netherlands.
Mork, K. A. (2026). Tema: Klimastatus. Hentet [01.04.2026] fra: https://www.hi.no/hi/temasider/hav-og-kyst/klimaet-i-havet/klimastatus
Moy, F. E., & Christie, H. (2012). Large-scale shift from sugar kelp (Saccharina latissima) to ephemeral algae along the south and west coast of Norway. Marine Biology Research, 8(4), 309–321.
Myksvoll, M. S., Sandvik, A. D., Skarðhamar, J., & Sundby, S. (2012). Importance of high resolution wind forcing on eddy activity and particle dispersion in a Norwegian fjord. Estuarine Coastal and Shelf Science, 113, 293–304.
NEAFC. (2014). Recommendation on the protection of vulnerable marine ecosystems in the NEAFC Regulatory Area. In: North East Atlantic Fisheries Commission London.
Norderhaug, K., & Christie, H. (2009). Sea urchin grazing and kelp re-vegetation in the NE Atlantic. Marine Biology Research, 5(6), 515–528.
Norderhaug, K., Christie, H., Fossa, J., & Fredriksen, S. (2005). Fish-macrofauna interactions in a kelp (Laminaria hyperborea) forest. Journal of the Marine Biological Association of the United Kingdom, 85(5), 1279–1286.
Norderhaug, K., Dalpadado, P., Diesing, M., Gundersen, H., Hancke, K., Mousing, E., & Skogen, M. (2023). Karbonbinding i marint plankton, marine vegetasjonstyper og marine sedimenter. In: Vee I, Frantzen S, van der Meeren G, Arneberg P (Eds.). Status for miljøet i norske havområder— Rapport fra Overvåkingsgruppen 2023. Rapport fra havforskningen 2023-24. Havforskningsinstituttet.
Øien, I. J., & Aarvak, T. (2008). Dverggås i Norge. Kunnskapsstatus og forslag til nasjonal handlingsplan. Norsk Ornitologisk Forening, Rapport 3-2008. 58 s.
Olesen, B. (1996). Regulation of light attenuation and eelgrass Zostera marina depth distribution in a Danish embayment. Marine Ecology Progress Series, 134, 187–194.
Olsen, E. M., Karlsen, Ø., & Skjæraasen, J. E. (2023). Large females connect Atlantic cod spawning sites. Science, 382(6675), 1181–1184.
Orlov, Y. I., & Ivanov, B. G. (1978). On the introduction of the Kamchatka king crab Paralithodes camtschatica (Decapoda: Anomura: Lithodidae) into the Barents Sea. Marine Biology, 48(4), 373–375.
Oskars, T. R., Vabø, Ø. S., Ipsen, R. M. S., & Emblemsvåg, M. (2025). Rapid assessment of cold-water coral habitats in public management maps: a rapid assessment of a fjord with no records of corals. Biodiversity and Conservation, 34(6), 2197–2214.
OSPAR (2008). List of threatened and/or declining species and habitats. Hentet [01.10.2024] fra: https://www.ospar.org/work-areas/bdc/species-habitats/list-of-threatened-declining-species-habitats/habitats
Oug, E., & Fuhrmann, M. M. (2013). Bunndyrsamfunn i foreslått marint verneområde i indre Porsangerfjorden. Artssammensetning og biomasse før invasjon av kongekrabben 2011. RAPPORT L.NR. 6556-2013. Norsk institutt for vannforskning.
Patent, D. H. (1970). Life history of the basket star, Gorgonocephalus eucnemis (Müller & Troschel)(Echinodermata; Ophiuroidea). Ophelia, 8(1), 145–159.
Pecuchet, L., Mohamed, B., Hayward, A., Alvera-Azcárate, A., Dörr, J., Filbee-Dexter, K., Kuletz, K. J., Luis, K., Manizza, M., Miller, C. E., Staehr, P. A. U., Szymkowiak, M., & Wernberg, T. (2025). Arctic and Subarctic marine heatwaves and their ecological impacts. Frontiers in Environmental Science, Volume 13 - 2025.
Pedersen, T., Fuhrmann, M. M., Lindstrøm, U., Nilssen, E. M., Ivarjord, T., Ramasco, V., Jørgensen, L. L., Sundet, J. H., Sivertsen, K., Källgren, E., Hjelset, A. M., Michaelsen, C., Systad, G., Norrbin, F., Svenning, M. A., Bjørge, A., Steen, H., & Nilssen, K. T. (2018). Effects of the invasive red king crab on food web structure and ecosystem properties in an Atlantic fjord. Marine Ecology Progress Series, 596, 13–31.
Pedersen, T., Strand, H. K., Christie, H., & Moy, F. (2020). Predation mortality from ambush and cruising predators on newly-settled 0-group gadoids. Journal of Experimental Marine Biology and Ecology, 529, 151396.
Peña, V., Bárbara, I., Grall, J., Maggs, C. A., & Hall-Spencer, J. (2014). The diversity of seaweeds on maerl in the NE Atlantic. Marine Biodiversity, 44(4), 533–551.
Persen, S., & Andersen, S. (2011). "Den gang var det jo rikelig med fisk" : lokal kunnskap fra Porsanger og andre fjorder : artikler med utgangspunkt i Fávllis-nettverket. Universitetet i Tromsø; Sjøsamisk kompetansesenter.
Pessarrodona, A., Filbee-Dexter, K., Krumhansl, K. A., Pedersen, M. F., Moore, P. J., & Wernberg, T. (2022). A global dataset of seaweed net primary productivity. Scientific Data, 9(1), 484.
Priou, P. (2015). Associations between herbivorous zooplankton, phytoplankton and hydrography in Porsangerfjord, northern Norway. (Master thesis), University of Tromsø, Norway.
Ramasco, V., Lindström, U., & Nilssen, K. T. (2017). Selection and foraging response of harbour seals in an area of changing prey resources. Marine Ecology Progress Series, 581, 199–214.
Rinde, E., Moy, S. R., Tveiten, L. A., Kvile, K. Ø., Walday, M. G., Christie, H., Marijana Stenrud, B., Kile, M. R., Bekkby, T., & Gitmark, J. K. (2022). Feltbasert kunnskap, metodikk og kriterier for økologisk kvalitet til et utvalg av marine naturtyper. RAPPORT L.NR. 7691-2022. Norsk institutt for vannforskning.
Runhovde, M. (2026). Soft bottom community structure in inner Porsangerfjord before and after the invasion of the red king crab. (Master), University of Bergen,
Samuelsen, A., Hansen, C., & Wehde, H. (2015). Tuning and assessment of the HYCOM-NORWECOM V2. 1 biogeochemical modeling system for the North Atlantic and Arctic oceans. Geoscientific Model Development, 8(7), 2187–2202.
Sauvage, T., Schmidt, W. E., Suda, S., & Fredericq, S. (2016). A metabarcoding framework for facilitated survey of endolithic phototrophs with tuf A. BMC Ecology, 16(1), 8.
Scheibling, R., Feehan, C., & Hatcher, B. (2020). Chapter 31 - Strongylocentrotus droebachiensis. In J. M. Lawrence (Ed.), Developments in Aquaculture and Fisheries Science (Vol. 43, pp. 553–591). Department of Integrative Biology, University of South Florida, Tampa, Florida, United States.
Schoenrock, K. M., Vad, J., Muth, A., Pearce, D. M., Rea, B. R., Schofield, J. E., & Kamenos, N. A. (2018). Biodiversity of kelp forests and coralline algae habitats in southwestern Greenland. Diversity, 10(4), 117.
Sivertsen, K. (1997). Geographic and environmental factors affecting the distribution of kelp beds and barren grounds and changes in biota associated with kelp reduction at sites along the Norwegian coast. Canadian Journal of Fisheries and Aquatic Sciences, 54(12), 2872–2887.
Sivertsen, K., & Bjørge, A. (2015). On the brink of the Arctic: Unusual intertidal sub-Arctic kelp associations in the Porsangerfjord, North Norway. Marine Biology Research, 11(4), 405–413.
Skarðhamar, J., Albretsen, J., Sandvik, A. D., Lien, V. S., Myksvoll, M. S., Johnsen, I. A., Asplin, L., Ådlandsvik, B., Halttunen, E., & Bjørn, P. A. (2018). Modelled salmon lice dispersion and infestation patterns in a sub-arctic fjord. ICES Journal of Marine Science, 75(5), 1733–1747.
Skarðhamar, J., Sandvik, A. D., Sævik, P. N., Albretsen, J., & Søvik, G. (2026). Fjord retention and dispersion of shrimp larvae (Pandalus borealis) in Northern Norway. Fisheries Research, 293, 107639.
Skjoldal, H. R. (2004). Endelig tilråding med forslag til referanseområder. Råd til utforming av marin verneplan for marine beskyttede områder i Norge. Rådgivende utvalg for marin verneplan 30. juni 2004.
Skogen, M. D., & Søiland, H. (1998). A user's guide to NORVECOM V2. 0. the norwegian ecological model system. Havforskningsinstituttet.
Sommersel, G.-A., & Skulgam, T. (2014). Kvitsjøsalturt i Porsanger kommune. Søk etter nye forekomster i 2014. Ecofact rapport 438. 23 s.
Søvik, G., Zimmermann, F., Husson, B., Strand, H. K., Jørgensen, L. l., Strand, M., Thangstad, T. H., Hansen, A., Båtevik, T., Albretsen, J., & Staby, A. (2020). Kartlegging av fjordøkosystemene i Tana- og Porsangerfjorden. Rapport fra havforskningen 2020-39. Havforskningsinstituttet.
Stevens, B. G. (2014). Embryo development and hatching of king crabs. In B. G. Stevens (Ed.), King crabs of the world: biology and fisheries management (pp. 211–231). USA: CRC Press 2014.
Strand, H. K. (2019). Porsangerfjorden 2.0. En mulighetsstudie. Rapport fra havforskningen 2019-7. Havforskningsinstituttet.
Strand, H. K., Daleng, J., Eliassen, T., Follesø, T., Hansen, H. O., Hansen, T., Johansen, H., Josefsen, H., Larsen, D., Martinsen, T., Pedersen, T., Skern-Mauritzen, M., Strand, M., Søvik, G., & Zimmermann, F. (2020a). Essay om fiskerier i Porsangerfjorden før og nå - et resultat av møter mellom fjordbrukere og forskere. Rapport fra havforskningen 2020-41. Havforskningsinstituttet.
Strand, H. K., Pedersen, T., Christie, H., & Moy, F. (2020b). Synergism between cruising cod and ambush sculpin predators on 0-group gadoids is modified by daylight cycle and presence of aggressive wolffish. Journal of Experimental Marine Biology and Ecology, 526, 151356.
Strohmeier, T., Strand, Ø., Haugland, B. T., & Agüera, A. (2024). Baseline for the Northeast Atlantic (58–70° N) intertidal Mytilus species complex (Mytilus spp.). Ecology and Evolution, 14(8), e70197.
Svendsen, H. (1995). Physical oceanography of coupled fjord coast systems in northern Norway with special focus on frontal dynamics and tides. In H. R. Skjoldal, Hopkins, C., Erikstad, K.E., Leinaas, H.P. (Ed.), Ecology of Fjords and Coastal waters (pp. 632). Amsterdam: Elsevier Science.
Teichert, S., Woelkerling, W., Rüggeberg, A., Wisshak, M., Piepenburg, D., Meyerhöfer, M., Form, A., Büdenbender, J., & Freiwald, A. (2012). Rhodolith beds (Corallinales, Rhodophyta) and their physical and biological environment at 80 31′ N in Nordkappbukta (Nordaustlandet, Svalbard Archipelago, Norway). Phycologia, 51(4), 371–390.
Thorstad, E., Staveley, T., & Fiske, P. (2024). Pink salmon in rivers: current knowledge, overlap and potential interactions with Atlantic salmon. North Atlantic Salmon Conservation Organization, NASCO Council CNL, 51(24), 1–10.
Torres, F. I., Lara, C., Sillero, N., & Broitman, B. R. (2025). Climate-induced habitat shifts of farmed mussel species. Aquaculture, 602, 742304.
Trautmann, M., Bartsch, I., Bligh, M., Buck-Wiese, H., Hehemann, J.-H., Niedzwiedz, S., Plag, N., Shan, T., Bischof, K., & Diehl, N. (2024). Impact of climate change on the kelp Laminaria digitata: Biochemical and physiological raw data of a long-term experiment simulating Artic winter warming.
Valliant, M. L., Nickel, A., Edvardsson, R., & Ólafsdóttir, G. Á. (2025). Complementing Beach Seining With Dive Surveys Improves Fine-Scale Resolution of 0-Group Gadoid Distributions in Nearshore Habitats. Ecology and Evolution, 15(7), e71674.
Wiborg, K. F. (1963). Some observations on the Iceland scallop Chlamys islandica (Muller) in Norwegian waters. Fiskeridirektoratets Skrifter Serie Havunders›kelser, 13, 38–53.
Williams, G. C., & Lundsten, L. (2009). The nephtheid soft coral genus Gersemia Marenzeller, 1878, with the description of a new species from the northeast Pacific and a review of two additional species (Octocorallia: Alcyonacea). Zoologische Mededelingen, 83(34), 1067–1081.
Wilson, S., Blake, C., Berges, J. A., & Maggs, C. A. (2004). Environmental tolerances of free-living coralline algae (maerl): implications for European marine conservation. Biological Conservation, 120(2), 279–289.
Zimmermann, F., Tengvall, J., Strand, H. K., Nedreaas, K., Thangstad, T. H., Husson, B., & Søvik, G. (2023). Fine-scale spatial variation of northern shrimp and Atlantic cod across three Norwegian fjord systems and implications for management. Estuarine, Coastal and Shelf Science, 292.
8 - Vedlegg 1
Figur 51. Temperatur og anomalier ved 100 m dyp i Østerbotn. Temperaturmålingene (svart, CTD) er fra Havmiljødataprosjektet UiT (4-8 ganger pr år 1980-2019) og fra Havforskningsinstituttets tokt (1980-2025). Modellert temperatur er ikke tilgjengelig for dette målestasjon.
Figur 52. Temperatur og anomalier ved 150 m dyp i Vest Porsanger. Temperaturmålingene (svart, CTD) er fra Havmiljødataprosjektet UiT (4-8 ganger pr år 1980-2019) og fra Havforskningsinstituttets tokt (1980-2025). Modellert temperatur (blått) er fra Norkystmodellen, høyoppløselig modellområde NFA12.
Figur 53. Temperatur og anomalier ved overflate (3 m) i Østerbotn. Temperaturmålingene (svart, CTD) er fra Havmiljødataprosjektet UiT (4-8 ganger pr år 1980-2019) og fra Havforskningsinstituttets tokt (1980-2025). Modellert temperatur er ikke tilgjengelig for dette målestasjon.
Figur 54. Temperatur og anomalier ved overflate (3 m) i Vest Porsanger. Temperaturmålingene (svart, CTD) er fra Havmiljødataprosjektet UiT (4-8 ganger pr år 1980-2019) og fra Havforskningsinstituttets tokt (1980-2025). Modellert temperatur (blått) er fra Norkystmodellen, høyoppløselig modellområde NFA12
9 - Vedlegg 2
Dato 2025
Lokal stasjon
Område
Transekt tid start - stop (UTC)
Ca. Lengde (m)
Dyp start - stop (m)
Breddegrad/ lengdegrad start (DDM)
Breddegrad/ lengdegrad stop (DDM)
Transekt Beskrivelse
Terreng
Substrat
Mest dominante arter
Kommentar
27.7
1
Sør øst
10:27 - 11:03
731
22-18
70°06.105/ 25°05.321
70°06.455/ 25°05.180
Beskyttet område
Flat
Mest bløtbunn, stein og blokk
Kongekrabbe, Sabellidae, skorpedannende rødalger (kalkalger), en god del Cerianthidae
Mye "burrows", detritus Landobservasjon: Tangsammfunn.
Bløtbunn med dypvannsreker og en del fisk. GoPro feilet.
27.7
3
Østerbotn
14:26 - 14:43
229
47-20
70°07.751/ 25°09.798
70°07.82/ 25°09.441
Beskyttet område
Svak skråning - bratt
Sand med skjell, noen stein
Kjerringhår, sukkertare, kalkalger, få haneskjell
Først kalkalger til ca. 10 m, litt rugl under kjerringhår, mye dødt rugl. Sukkertare fra 25-15m.
27.7
4
Store ørnøy
15:30 - 15:54
469
12-26
70°10.95/ 25°11.129
70°10.957/ 25°11.395
Beskyttet
Svak skråning
Sand, skjellsand
Sukkertare, kongekrabbe, kalkalger, død rugl, haneskjell
Mye død Mya arenaria skjell i begynnelsen. Noe haneskjell, mest på slutten, tetthet 1-2. Mye krabbe i haneskjell. Død rugl og noen få rugl i live. Mye spiseaktivitet fra kongekrabben.
Grus, men noen interessante svamper, anemoner og andre hardbunnsarter på blokk. Litt større svamper som Weberella brusa, men ikke høy tetthet. Anemonebunn. Veldig lite avsnitt med bløtkorallbunn. Tok kamera opp i mellom.
Dårlig sikt. Mye partikler i vannet. Diverse hardbunnsfauna med noen bløtkorall (flekkevis, ellers lave tettheter), anemoner og svamp (rund, uidentifisert.). Svampesamfunn, men alle relativ små og ikke habitatbyggene.
29.7
10
Hamnholmen
13:05 - 13:25
292
10-9
70°24.429/ 25°19.538
70°24.286/ 25°18.933
Beskyttet
Flat
Sand, grus
Sukkertare, Butare, kjerringhår, Tang
Blandet tareskog med sukkertare og butare. Også nesten ren Butarebunn. Noe dødt rugl i begynnelsen. Noe tang.
Noe rugl, men veldig lite levende. Også mange O-skjell - men kryptisk. Rugl et lite avsnitt. Buskete rødalger. Mange krabber. Få og kort avsnitt med sukkertare. Haneskjell ca. halvparten av transektet, men bare kort avsnitt med høyere tettheter > 25%.
Kort avsnitt med sukkertareskog- Butare observert. Haneskjell ca. halvparten av transektet, men lave tettheter < 25%. Landobservasjon: Tangsamfunn på øyene rundt. Steinkobber.
Noe levende rugl, men ikke nok for å danne naturtype. Sukkertareskog på begynnelsen og slutten. Problemer med live kamera.
30.7
15
Sjåholmen
08:53 - 09:04
182
31-4
70°18.174/ 25°20.404
70°18.212/ 25°20.649
Beskyttet
Svak skråning
Sand
Haneskjell, kjerringhår, kalkalger, sukkertare
Mye bølger, så gikk litt sør. Haneskjell ca. halvparten av transektet, flekkehvis > 50% men mest <25%.
30.7
16
Rantalabukta + Djupvika
09:24 - 09:51
625
43-7
70°17.702/ 25°19.405
70°17.398/ 25°19.281
Beskyttet
Svak skråning
Sand og grus med mudderlag
Haneskjell, kjerringhår, anemoner, svamper
Problemer med live kamera. Sjekk Gopro for tetthet av haneksjell. Haneskjell nesten hele transekt, 2/3 ganske tett >25%. Litt rugl på slutten og kort avsnitt med sukkertare > 25%. Butare observert. Landobservasjon i Djupvika - blåskjellbunn.
Fin ruglbunn 3/4 av transektet, en god del > 50% dekning. Haneskjell på slutten av transektet, men lave tettheter. Mye krabbe i haneskjellområde. Sukkertare på begynnelsen, men lave tettheter. Få fingertare.
Litt haneskjell på begynnelsen, men veldig lav tetthet. Ruglbunn mest av transektet med mest 25-50% dekning. Litt sukkertare og tang på slutten med lav dekning.
30.7
20
Tjeldgrunnen
14:39 - 14:56
415
20-4
70°15.691/ 25°25.733
70°15.826/ 25°26.313
Litt mer eksponert, strøm
Svak skråning
Sand, grus
Rugl, brunpølse, kjerringhår, sukkertare
Ruglbunn fra starten opp til 5 m. ca. halvparten med dekning > 50%. Få sukkertare. No phone GPS, use Garmin. Ingen haneskjell.
30.7
21
Israndavsetninger, Ainek
15:22 - 15:40
244
57-47
70°14.968/ 25°22.653
70°15.095/ 25°22.674
Strøm, mye partikler i vannet
Bratt - svak skråning
Sand med skjellfragmenter, grus med stein og blokk
Ingen konkekrabbe men spor. Lite fauna i begynnelsen. En del "burrows". Ålekvabbe. Vanskelig å holde sakte fart. Anemonebunn blandet med svamp på slutten.
Typisk hardbunnsfauna med anemoner, svamper og mye skorpedannende dyr på begynnelsen. Så litt Haneskjell, også veldig fin ruglbunn med buskete rødalger blandet med sukkertare. Dekning rugl > 50% i ca. halvparten av linja.
Veldig fin ruglbunn ca. halvparten av transektet med dekning > 50%; en del O-skjell også, men vanskelig å se (kryptisk), så ikke annotert i SFO. Filtrerende slangestjerner og brunpølse. Sukkertare og butare på slutten.
Mye tang rester på bunnen i begynnelsen. Anemonebunn og skorpedannende dyr, noen få bløtkorall. Et kort avsnitt med rugl på rundt 15 m, lave tettheter. Mye dødt haneskjell og O-skjell. Flekker med sukker/butare på slutten.
Mye vind i dag. Først sukkertareskog (spredt) med mye Korstroll (Asterias sp.), også små blåskjell og fintrådige alger. Til slutt blandet tangsamfunn med typisk sonering (Sagtang/Blæretang-Grisetang), mye nye rekrutter av blåskjell - men ikke klassisk blåskjellbunn. Størrelsesfordeling på 90/10/0.
Veldig fin ruglbunn i ca. 300m med brunpølse og haneskjell (med lav dekning <25%). Mye dødt skjell. Noen interessante svamper. Transekt med småbåt - funket dårlig siden fart var for rask og vinden for sterk. Dro tilbake til Lakselv.
Fin ruglbunn med dekning >50% i 100m. O-skjell, haneskjell, brunpølse og kameleonslangestjerne. Så stein/grus med haneskjell, kalkalger, skorpedannende dyr. Haneskjell mest <5%. En god del kongekrabbe. Mye dødt haneskjell, men også andre død skjell.
3.8
34
Mammal fua nord
11:16 - 11:42
519
13-18
70°13.173/ 25°11.205
70°13.015/ 25°11.455
Litt strøm
Svak skråning
Sand, grus
Rugl, haneskjell, brunpølse, noen svamper (uidentifisert), sukkertare, butare
Ruglbunn med dekning 25-50% med brunpølse på starten i ca. 100m. Blandet med haneskjell, mest <25% dekning. Så fin sukkertareskog fra ca. 15m blandet med noe få butare.
3.8
35
Mammal sør
12:09 - 12:20
134
9-30
70°13.055/ 25°09.399
70°12.980/ 25°09.356
Litt strøm, mye partikler i vannet
Bratt
Sand, sand med skjellfragmenter, bløtbunn med grus og skjellfragmenter, stein
Først flekket sukkertareskog (lav dekning >25%), så haneskjell (mest 1-5% dekning) og anemoner.
3.8
36
Mammal sør
12:03 - 13:23
417
9-25
70°14.491/ 25°14.157
70°14.329/ 25°13.883
Beskyttet, mye partikler i vannet
Svak skråning - flat
Sand med skjell grus, stein
Rugl, kjerringhår, haneskjell, noen O-skjell, sukkertare
Spredt ruglbunn på starten (50m), mye kjerringhår, en god del kongekrabbe, spredt haneskjell hele veien (men dekning mest <25%) og sukkertare. Også mye død skjell.
Variert transekt med bløtbunn på begynnelsen og grus og stein på slutten med veldig få haneskjell (<5%). Bløtkorall flekkehvis. Tok kamera opp etter vi møt en vegg.
3.8
40
Israndavsetninger
07:06 - 07:21
256
55-87
70°16.913/ 25°12.952
70°17.048/ 25°12.952
En god del strøm, dårlig sikt, mye partikler i vannet
Fin hardbunnsfauna, med mange store anemoner og større svamp (forskjellige arter). Flekkevis svampesamfunn på ca. 50-60m. Noen få bløtkorall. Spredt haneskjell med lav dekning hele transektet. Dårlig sikt.
4.8
41
Vest av Reinøya
07:49 - 08:10
484
55-75
70°15.254/ 25°09.500
70°15.501/ 25°09.439
Beskyttet, mye partikler i vannet
Svak skråning - flat
Bløtbunn men noen stein, bløtbunn
Anemoner (Hormathia sp.), bløtkorall, svamper (Mycale lingua, Polymastiidae), noen få haneskjell, noen Gorgonocephalus sp., Zoarcoidei
Litt sjø, flytter oss lenger sør og drifter over lokasjon. Tett bløtkorallskog blandet med anemoner på mudderbunn med stein, også bløtbunn med mange "burrows" men ellers lite fauna.
4.8
42
Mjelleklubben, Israndavsetninger
08:35 - 08:51
288
62-48
70°14.838/ 25°06.355
70°14.981/ 25°00.329
Beskyttet, mye partikler i vannet
Svak skråning
Bløtbunn men noen få stein og blokk, grus, skjellfragmenter
Først bløtbunn også grus og skjellrester med spredt sukkertare, noe tang. Bentiske microalger? (brun). Mye død rugl, men lite i live (alltid <5%). Mye røde tuftete alger. Spredt forekomst av haneskjell helt på slutten fra 18m, en god del død skjell.
4.8
44
Gurjoluokta Kurjulahti
10:47 - 11:02
740
10-13
70°17.030/ 25°16.366
70°17.135/ 25°16.199
Beskyttet bukt med sandstrand
Svak skråning
Grus, grus med mye skjellfragmenter og mudderlag
Haneskjell, anemoner (Hormathia sp.), svamper (mest skorpedannende), noen få sukkertare, kalkalger
Mye sjø i bukta. Flyttet båten en stykke etter første del av transektet og satt ut på dypere vann. Grus med en del anemoner og spredt haneskjell med lav dekning (<5%) i ca. 200m. Mye detritus på starten.
Sukkertare, buskete rødalger, Haneskjell, anemoner (Hormathia sp.), noen svamper (cf Suberitus carnosus, Mycale lingua), noen bløtkorall
Drifter ganske fort. Først nedover også oppover. Helt i starten spredt sukkertare, også anemoner og haneskjell på bløtbunn/grus men antakelig veldig lavd dekning (mest <5%). Litt vanskelig å se hvilken er i livet.
5.8
46
Lille Ørnøya
09:16 - 09:43
344
30-2
70°11.982/ 25°07.872
70°11.933/ 25°08.276
Litt mer eksponert, veldig mye partikler i vannet og på tare
Bløtbunn på starten med lite fauna men mye langebarn, mye detritus. Litt dårlig sikt. Sukkertareskog fra ca. 12m også blandet med butare i totalt ca. 120m.
Variert transekt. Fin haneskjellbunn i starten (ca. 200m) med mange levende (dekning >50%) på grus. Veldig fin sukkertareskog blandet med butare i ca. 300m, dekning >50% på slutten av transektet. Kasterim prøve.
Haneskjellbunn i starten på grus, en god del levende (dekning mest 25-50%) i ca. 250m. Kort avsnitt med ruglbunn, men ellers mer død rugl. Sukkertareskog på slutten (ca- 70m).
En god del partikler i vannet og sediment på sukkertare. Noe rugl under kjerringhår. Andre tråd brunalger. Høgeste tetthet av kråkeboller så langt. Mye detritus på slutten.
5.8
50
Spissen av Olgutt
13:16 - 13:27
318
10-20
70°14.214/ 25°04.044
70°14.335/ 25°02.354
Litt mer eksponert
Svak skråning
Sand, grus
Kjerringhår, sukkertare, noen haneskjell
Sukkertare <25% dekning hele transektet. Mye detritus på starten. Partikler i vannet og på tare. Mye kongekrabbe. Noen få individer av haneskjell.
5.8
51
Mellom Olggut og Stuorrajatkkis
13:39 - 14:12
1567
33-5
70°13.877/ 25°02.957
70°13.518/ 25°01.133
Beskyttet bukt
Svak skråning
Bløtbunn med skjellfragmenter, grus
Anemoner (Hormathia sp.), noen bløtkorall, sukkertare
Bløtkorall helt i starten (få meter). Noen haneskjell på slutten <5% dekning. Død skjell, men også andre enn haneskjell. Litt sukkertare helt på slutten. Fikk problemer med live cam og kom opp. Gikk ned igjen. Mye detritus med lite fauna.
5.8
52
Nordøst av Coagan
14:39 - 14:48
166
37-37
70°11.553/ 25°02.263
70°11.534/ 25°02.154
Beskyttet basseng, veldig mye partikler i vannet
Flat
Bløtbunn
Bløtkorall (Gersemia sp.), Zoarcoidei
Dårlig sikt, mye "burrows". Flekkehvis med bløtkorall (ca. 100m).
Noen bløtkorall på starten, men mindre tett enn transekt 52. Mye "burrows" og fisk.
5.8
54
Indre Vesterbotn
12:54 - 13:24
496
21-5
70°06.268/ 24°57.491
70°06.535/ 24°57.398
Beskyttet, nært elve utlet
Svak skråning
Bløtbunn med grus og noen stein
Sukkertare, Sabellidae, Kongekrabbe, Zoarcoidei, buskete rødalger, kalkalger, Porifera (uidentifisert), reker (uidentifisert), Tubularia sp., noen få fingertare
Dårlig sikt, og en del detritus. Sclerocrangon. , Tubularia. Sukkertareskog (<50% dekning) ca. halvparten av transektet. Kanskje noen haneskjell men vanskelig å se pga sedimentet. Detritus av grønnalger og en fingertare.
6.8
55
Indre Vesterbotn
13:56 - 14:40
1772
1-3
70°06.106/ 24°58.430
70°06.545/ 24°58.123
Beskyttet område
Flat
Bløtbunn med stein og blokk
Blåskjell, blæretang, grisetang
Ingen SFO logging - transekt med småbåt. Flekkevis blåskjell langs hele transektet. Størrelsesfordeling av blåskjell små 80% / middels 20% / stor 0%. Sukkertare på et kort stykke (50m) fra ca. 5m. To korte avsnitt med ålegress (ca. 10m).
6.8
56
Sør Ressikä
15:42 - 16:51
2968
1-1
70°08.939/ 24°58.964
70°09.924/ 25°01.754
Beskyttet mellom øyene
Flat
Sand, grus, noen stein
Sukkertare, fingertare, søl, blåskjell, noe blæretang, sagtang, åletang, trådalger, buskete rødalger, Arenicola marina, noe butare
Tareskog med sukker-, og butare, nesten hele transektet. I slutten av sesongen, ganske råtne blad. Dekket i blåskjell rekrutter andre delen av transektet. Tangsamfunn i fjæresonen. Ingen SFO logging - transekt med småbåt. Størrelsesfordeling av blåskjell små 100% / middels 0%./stor 0% Sukkertare på litt dypere, ca. 5m
6.8
57
Israndavsetninger, Laiva
18:44 - 19:00
211
1-64
70°09.392/ 25°14.733
70°09.489/ 25°14.873
Eksponert område
Bratt
Grus med stein, bløtbunn med skjellfragmenter, bløtbunn
Mye død haneskjell, men også andre arter. Dårlig sikt, mye partikler i vannet. Bløtbunn med noen større bløtkorall, men ikke høy tetthet.
7.8
58
West av Coagan
08:57 - 09:10
407
7-19
70°10.568/ 25°04.531
70°10.763/ 25°04.464
Bukt med strøm
Svak skråning
Sand, bløtbunn
Sukkertare, kjerringhår
Sukkertare på slutten (ca. 100m) men mest dekning <25%. Mye partikler i vannet og på tare. Mye detritus. Mye vind, så søker stasjon med le. Sukkertare på grunt vann.
7.8
59
Klubbukt
09:37 - 10:10
860
4-9
70°09.368/ 25°03.553
70°09.722/ 25°03.117
Bukt
Svak skråning - flat
Sand, bløtbunn
Sukkertare, kjerringhår
Likt forrige transekt. Flekkevis med sukkertare på grunt vann i ca. 250m. Mye partikler i vannet og på tare. Mye detritus. Mye vind, så søker stasjon med le. Mye burrows.
7.8
60
Sørost Coagan
11:01 - 11:13
258
5-6
70°09.792/ 25°06.993
70°09.903/ 25°06.900
Eksponert område
Flat
Sand, bløtbunn
Sukkertare, kjerringhår
Likt forrige transekt. Flekker med sukkertare <25% hele transektet. Mye partikler i vannet og på tare. Mye detritus. Mye vind.
Mest detritus, partikler i vannet og på tare. Veldig få haneskjell <5% på et lite stykke, men det er vanskelig å se om disse er i livet pga sedimentet. Flekkevis med sukkertare i ca. 50m.
Litt dårlig sikt, mange kongekrabber og sporer av spiseaktivitet. Sukkertareskog nesten hele transektet, mest 25-50% dekning. Ruglbunn under tare, første 2/3 deler av transektet, mest <25%, flekkevis med større dekning men vanskelig å se. Noen få haneskjell. På slutten veldig fin tareskog, med lag av rugl under. Muligens mange mer O-skjell.
Mye problemer med live kamera, kartet stemte ikke med faktisk dybde. Mye kongekrabbe. Rugl bare helt til slutt med mest <5%. Haneskjell hele transektet, men mest <5%. Flekkehvis med sukkertare.
31.7
Sup1
Aarons vannberg
13:31 - 14:18
1456
1.5-3
70°16.068/ 25°28.245
70°16.628/ 25°29.346
Få meter fra land, relativt beskyttet
Flat
Sand, grus, stein
Sukkertare, blæretang, sagtang, få blåskjell
Transekt med småbåt, ingen GoPro - brukte undervannskikkert med observasjoner ca. hver 50m. Sukkertareskog mesteparten av transektet med dekning >50%. Noe tang imellom og få blåskjell.
2.8
Sup2
Innerst Brennelvfjorden
12:10 - 12:35
977
1-1
70°03.540/ 25°01.344
70°03.518/ 25°01.053
Få meter fra land, beskyttet bløtbunnsområde
Flat
Sand
Arenicola marina, tråd-grønnalger, blæretang
Transekt med småbåt. Bløtbunnsområde med fintrådige grønnalger, mye Arenicola feces, få blåskjell. Også «siphons» fra muslinger som for eks. Macoma baltica. Noe blæretang.
Tabell 5. Oversikt over videolinjer (transekter) gjennomført under kartleggingen i Indre Porsangerfjord i 2025. Registrerte naturtyper og tilleggsvariabler er visst i tabell 6.
Lokal stasjon
Mengde død rugl (1-3)1
Mengde død haneskjell (1-2)1
Mengde død blåskjell (1-2)1
Antall kongekrabber observert i felt
Naturtype
Observerte tettheter (1-4)2
Tetthet kråkeboller (1-4)1
Tetthet fintrådige alger (1-4)1
1
NA
NA
NA
18
Sylindersjørosebunn
Til stede
NA
1
2
NA
NA
NA
2
NA
NA
1
3
2
1
NA
3
Sukkertareskog
1
NA
1
Ruglbunn
1
NA
1
4
2
1
NA
18
Sukkertareskog
1-4
NA
1
Ruglbunn
1
NA
1
5
1
2
NA
7
Ruglbunn
1-2
NA
NA
Sukkertareskog
1
NA
NA
Haneskjellbunn
1
NA
NA
6
3
2
NA
3
Haneskjellbunn
1-4
NA
NA
Sukkertareskog
1
NA
NA
7
3
2
NA
6
Sukkertareskog/Butare-/Fingertarebunn
1-4
NA
2
Haneskjellbunn
1
NA
2
Ruglbunn
1
NA
NA
8
1
NA
NA
0
Anemonebunn
Til stede
NA
NA
Korallforekomster (Bløtkorall)
Til stede
NA
NA
9
NA
NA
NA
1
Korallforekomster (Bløtkorall)
Til stede
NA
NA
10
1
NA
NA
5
Sukkertareskog/Butarebunn
1-4
NA
2
Butarebunn
1-4
NA
2
11
2
2
NA
13
Haneskjellbunn
1-4
NA
NA
Ruglbunn
1-2
NA
NA
Sukkertarebunn
1-2
NA
NA
O-skjellbunn
2
NA
NA
12
1
1
NA
4
Sukkertareskog
1-4
NA
NA
Haneskjellbunn
1
NA
NA
13
1
NA
NA
3
Korallforekomster (Bløtkorall)
NA
NA
NA
14
3
1
NA
5
Sukkertareskog
1-2, 4
NA
1
Ruglbunn
1-2
NA
1
15
1
1
NA
2
Haneskjellbunn
1-4
NA
NA
Sukkertareskog
1-2
NA
NA
16
1
2
NA
2
Haneskjellbunn
1-4
NA
NA
Sukkertareskog/Butarebunn
1-2, 4
NA
NA
Ruglbunn
1-2
NA
NA
Blåskjellbunn
4
NA
NA
17
1
2
NA
4
Haneskjellbunn
1-4
NA
NA
Ruglbunn
1
NA
NA
Sukkertareskog
1
NA
NA
18
1
1
NA
15
Ruglbunn
1-4
NA
NA
Sukkertareskog/Fingertarebunn
1-3
NA
NA
Haneskjellbunn
1-3
NA
NA
19
1
1
NA
3
Haneskjellbunn
1
NA
NA
Ruglbunn
2-4
NA
NA
Tangsamfunn
1
NA
NA
Sukkertareskog
1-2
NA
NA
20
2
NA
NA
3
Sukkertareskog
1
NA
NA
Tangsamfunn
1
NA
NA
Ruglbunn
1-4
NA
NA
21
NA
1
NA
0
Korallforekomster (Bløtkorall)
Til stede
NA
NA
22
NA
NA
NA
0
Korallforekomster (Bløtkorall)
Til stede
NA
NA
23
NA
NA
NA
0
Korallforekomster (Bløtkorall)
Til stede
NA
NA
Anemonebunn
Til stede
NA
NA
24
NA
NA
NA
3
NA
NA
NA
NA
25
NA
NA
NA
1
NA
NA
NA
NA
26
3
1
NA
2
Ruglbunn
1-4
NA
NA
Anemonebunn
Til stede
NA
NA
Sukkertareskog
1
NA
NA
27
3
1
NA
1
Anemonebunn
Til stede
NA
NA
Ruglbunn
1-4
NA
NA
Haneskjellbunn
1
NA
NA
Sukkertareskog
1-3
NA
NA
28
3
2
NA
2
Haneskjellbunn
1-4
NA
NA
Ruglbunn
1-4
NA
NA
Sukkertareskog/Butarebunn
1-3
NA
NA
29
2
2
NA
1
Haneskjellbunn
1-2
NA
NA
Sukkertareskog
2-4
Ruglbunn
1-4
NA
NA
30
3
2
NA
4
Anemonebunn
Til stede
NA
NA
Haneskjellbunn
1-3
NA
NA
Ruglbunn
2-3
NA
NA
Sukkertareskog/Butarebunn
1-3
NA
NA
31
NA
NA
1
0
Sukkertareskog
1-4
NA
1
Blåskjellbunn
2
NA
1
Tangsamfunn
1-4
NA
2
32
2
1
NA
5
Ruglbunn
2-4
NA
NA
Haneskjellbunn
1-2
NA
NA
33
2
2
NA
8
Ruglbunn
1-4
NA
2
Haneskjellbunn
1-3
NA
2
34
1
1
NA
5
Ruglbunn
1-4
NA
NA
Haneskjellbunn
1-3
NA
NA
Sukkertareskog
1-4
NA
NA
35
NA
1
NA
0
Sukkertareskog
1-2
NA
NA
Haneskjellbunn
1-2
NA
NA
Anemonebunn
Til stede
NA
NA
36
1
2
NA
12
Ruglbunn
1-4
NA
NA
Haneskjellbunn
1-3
NA
NA
Sukkertareskog
1
NA
NA
37
NA
NA
NA
0
NA
NA
NA
NA
38
NA
NA
NA
1
Korallforekomster (Bløtkorall)
Til stede
NA
NA
39
NA
1
NA
1
Korallforekomster (Bløtkorall)
Til stede
NA
NA
Haneskjellbunn
1
NA
NA
40
NA
1
NA
0
Haneskjellbunn
1-2
NA
NA
Anemonebunn
Til stede
NA
NA
Korallforekomster (Bløtkorall)
Til stede
NA
NA
Svampesamfunn
Til stede
NA
NA
41
NA
NA
NA
0
Korallforekomster (Bløtkorall)
Til stede
NA
NA
Anemonebunn
Til stede
NA
NA
42
NA
NA
NA
0
Korallforekomster (Bløtkorall)
Til stede
NA
NA
Anemonebunn
Til stede
NA
NA
43
2
1
NA
2
Sukkertareskog
1-2
NA
NA
Ruglbunn
1
NA
NA
Haneskjellbunn
1
NA
NA
44
NA
1
NA
2
Anemonebunn
Til stede
NA
NA
Haneskjellbunn
1-2
NA
NA
45
1
1
NA
1
Sukkertareskog
1
NA
NA
Korallforekomster (Bløtkorall)
Til stede
NA
NA
Haneskjellbunn
1-2
NA
NA
Anemonebunn
Til stede
NA
NA
46
NA
NA
NA
4
Sukkertareskog
1-4
NA
NA
Sukkertareskog/Butarebunn
1-3
NA
NA
47
2
2
NA
4
Haneskjellbunn
2-4
NA
NA
Ruglbunn
2
NA
NA
Sukkertareskog/Butarebunn
1-4
NA
NA
Sylindersjørosebunn
Til stede
NA
NA
48
2
2
NA
2
Haneskjellbunn
1-2,4
NA
NA
Ruglbunn
2-3
NA
NA
Sukkertareskog
1-4
NA
NA
49
1
1
NA
0
Ruglbunn
1-3
1
1
Sukkertareskog
1-3
1
1
50
NA
NA
NA
4
Sukkertareskog
1-2
NA
NA
51
NA
1
NA
0
Anemonebunn
Til stede
NA
NA
Korallforekomster (Bløtkorall)
Til stede
NA
NA
(Haneskjellbunn)
1
NA
NA
Sukkertareskog
1
NA
NA
52
NA
NA
NA
1
Korallforekomster (Bløtkorall)
Til stede
NA
NA
53
NA
NA
NA
2
Korallforekomster (Bløtkorall)
Til stede
NA
NA
54
NA
1
NA
5
Sukkertareskog
1-4
NA
NA
55
NA
NA
1
0
Blåskjellbunn
1-3
NA
2
Sukkertareskog
2-3
NA
NA
Tangsamfunn
1-4
NA
2
Ålegraseng
2-4
NA
2
56
NA
NA
1
0
Sukkertareskog/Fingertarebunn
1-4
NA
2
Blåskjellbunn
1-4
NA
2
Tangsamfunn
1-3
NA
2
57
NA
2
1
0
Korallforekomster (Bløtkorall)
Til stede
NA
NA
58
NA
NA
NA
2
Sukkertareskog
1-3
NA
NA
59
NA
NA
NA
1
Sukkertareskog
1
NA
NA
60
NA
NA
NA
0
Sukkertareskog
1
NA
NA
61
NA
1
NA
1
Haneskjellbunn
1
NA
NA
Sukkertareskog
1-2
NA
NA
62
2
1
NA
6
Ruglbunn
1-4
1
1
Sukkertareskog/Butarebunn
1-4
1
1
63
2
2
NA
1
Haneskjellbunn
1-4
NA
NA
Sukkertareskog
1
NA
NA
Ruglbunn
1-2
NA
NA
Sup1
NA
NA
NA
1
Sukkertareskog
1-4
NA
NA
Tangsamfunn
1-3
NA
NA
Sup2
NA
NA
1
0
Tangsamfunn
1
NA
4
Tabell 6. Oversikt over videolinjer (transekter) gjennomført under kartleggingen i Indre Porsangerfjord i 2025. Det vises registrerte naturtyper og tilleggsvariabler registrert under kartleggingen. 1Se Tabell 3 for koding av tilleggsvariabler og demmes tetthetsklasser. 2Se Tabell 1 for koding av tetthetsklasser for naturtyper.